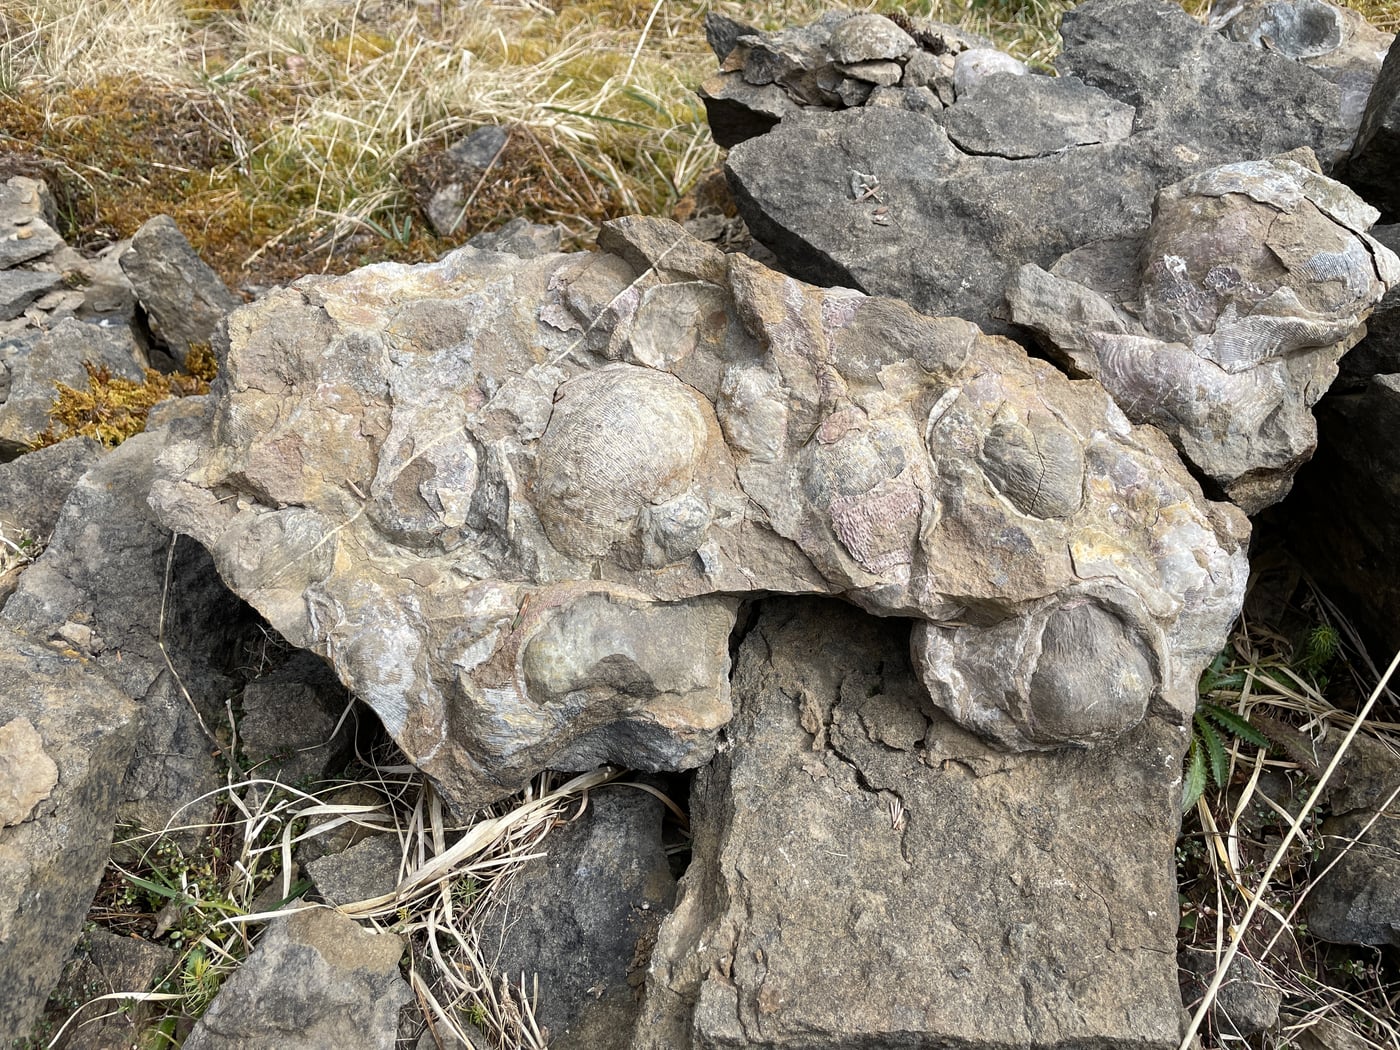
一枚来自远古海床的贝壳化石,有时会测出让它原来的主人难以生存的温度。2015 年,一项针对内华达州石炭纪 Bird Spring 组的研究,从腕足动物贝壳中测得的团簇同位素温度平均为 153°C。研究者将这一高温读数放回岩石漫长的埋藏与冷却历史中解释。[1]
这次测量确实回答了一个地质学问题,只是答案属于这枚贝壳经历中的另一个阶段。
团簇同位素测温法的吸引力正在于此:化石内部保存着比壳面肋纹、生长线或晶体纹理更细微的记录。稀有同位素原子的排列能够留下贝壳生长时的水温信息。要读出这份信息,就得查明这种排列何时固定下来,以及此后有哪些作用足以改变它。[2][5]
数清晶体里成对的原子
常用的氧同位素古温度测定法有一个难题。贝壳的氧同位素组成同时取决于生长温度和周围水体的同位素组成。古水体已经消失,一次测量却留下两个有待分辨的量。[3]
团簇同位素给出了另一条线索。碳和氧各有较轻与较重的同位素。在碳酸盐矿物内部,重同位素碳-13 与氧-18 彼此成键的倾向随温度而变。处于平衡状态时,形成温度越低,这类配对相对于随机分布的超出量就越大。[2]
实验室以间接测量读取原子配对信息,并未拍摄单个原子对的照片。研究者让碳酸盐与磷酸反应,再用质谱法分析生成的二氧化碳。其中一项称为 Δ47 的测量值,记录含特定重同位素组合的二氧化碳分子相对于随机分布预期的超出量。经过标定,这一信号便可换算成温度。[2]
Prosenjit Ghosh 及其同事在 2006 年展示了这套方法。它的一大优势是,估算温度时可以省去对已消失水体的氧同位素组成的预设。贝壳除了记录同位素的总体丰度,还记录着它们如何排列。[2]
对古生物学来说,一小块矿物由此有了通向动物生存环境的线索。不过,这支由生物造出的温度计,首先要在现生生物身上检验。
动物自身也会影响读数
腕足动物是颇具吸引力的研究材料:它们的贝壳广泛见于漫长地质历史中的化石记录,许多贝壳含有低镁方解石,而这种矿物长期以来被认为较能抵抗后期改造。Thomas Letulle 及其同事在 2023 年的一项研究中检验了现生腕足动物的贝壳,样本生长环境的温度范围为 −1.9 至 25.5°C。[3]
研究结果支持团簇同位素作为有效的温度指标,同时也确认,它们与用于其他碳酸盐的通用标定关系存在偏差。贝壳形成过程中,同位素排列有时尚未达到仅由温度决定的预期平衡状态。生长过程因此会留下自身的化学影响,通常称为“生物效应”(vital effect)。[3]
这种差别在化石埋入地下之前就已经值得留意。若信号在贝壳形成时便已偏离标准温标的预期,极佳的保存状况也会将这份偏差一并保留下来。
2023 年,Amelia Davies 牵头的另一项研究同时测量了 Δ47 和 Δ48 两种团簇同位素信号,以处理这一问题。两者之间的关系帮助研究者逐一估算各个腕足动物样本受到的非平衡效应影响,让校正能够依据每个样本的情况展开,摆脱了对所有贝壳统一使用同一个平均偏移量的做法。[4]
团队将这一方法用于南极西摩岛拉梅塞塔组(La Meseta Formation)的始新世腕足动物化石。在不确定性范围内,校正后的温度与已发表的同期双壳类测量结果相符。若直接采用未经校正的腕足动物 Δ47 读数,重建的水温就会低 6–11°C。[4]
这组比较为校正结果找到了具体的检验依据。将同一时期不同类群的贝壳放在一起对照,就能检验一次表观上的寒冷期究竟来自环境变化,还是来自某类动物形成骨骼的方式。
外形完好的贝壳,内部排列仍会因热而变
埋藏之后,另一种过程也会介入。持续受热能够重新排列固态矿物内部碳、氧同位素之间的化学键。化石在保留可辨识的壳体构造时,内部的团簇同位素温度计仍可发生变化。检验肉眼可见的形态是否留存,与检验原始原子排列是否留存,是两项不同的工作。[1][5]
Brock Shenton 及其同事研究的 Bird Spring 组岩石,曾埋藏在超过五公里的深处。他们的模型表明,腕足动物的团簇同位素信号曾在埋藏期间的最高温度下达到平衡,随后又在岩石冷却时记录了较晚的一个阶段。随着温度下降,原子重排逐渐慢到跟不上冷却的速度,最终读数反映的正是这一时刻。[1]
2025 年,Barbora Křížová 及其同事将这一问题带到意大利和克罗地亚的晚白垩世厚壳蛤类双壳动物化石中。伊斯特拉南部贝壳的测定温度为 34–41°C,弗留利-威尼斯朱利亚贝壳的读数则为 73–101°C。壳体纹理与化学成分的筛查削弱了大规模重结晶这一解释。作者将高温组的读数归因于埋藏期间团簇同位素信号被重置。[5]
他们还强调,不同化石中的碳酸盐,其原子重排速率各有差异。这项厚壳蛤研究仍未确立一个适用于所有化石碳酸盐的确定速率。同一段受热历史,可以保住一类贝壳的温度记录,也可以改变另一类贝壳的记录。[5]
因此,一份有说服力的温度重建,需要走出标本抽屉,追索地质背景。地层曾埋藏多深?最高温度是多少,又持续了多久?这些问题决定着仪器读到的是贝壳历史中的哪一段。
把贝壳放回它曾生活的海洋
古海水温度依然可以从这些记录中恢复。2018 年,Gregory Henkes 及其同事评估了一组跨越多个地质时期的贝壳化石记录,检视其中化学键重排的证据,并补充了新的石炭纪与二叠纪测量数据。对于“埋藏受热已经破坏这组记录中大部分原始温度信息”的观点,他们给出了否定结论。[6]
经过筛查后的重建结果显示,石炭纪低纬度海水大体在 25–30°C,古生代更早的一些时段则达到 35–40°C。这些结论有明确的适用范围,取决于该研究所用的样本及筛查体系;仅凭地质年龄相同,还不足以把这些温度套用到任意一枚贝壳上。[6]
这些研究为后续测温工作留下了具体做法。与现生动物比较,可以检验最初的温度记录过程;考察地质历史,可以检验记录能否保存;其他化石则可用于独立核验。每一次比较,都让实验室里的一个数值更接近遥远地质年代中的某个具体环境。[3][4][6]
贝壳曾在海中生长,又在岩石里停留了远为漫长的岁月。它藏在内部的温度计,留下的线索可以来自这两段经历中的任何一段。研究的收获,在于对两段历史都有足够的了解,从而认出究竟哪一段记录留存至今。
来源
- Brock J. Shenton 及其同事,〈Clumped isotope thermometry in deeply buried sedimentary carbonates: The effects of bond reordering and recrystallization〉,GSA Bulletin(2015)。石溪大学研究成果记录。
- Prosenjit Ghosh 及其同事,〈13C–18O bonds in carbonate minerals: A new kind of paleothermometer〉,Geochimica et Cosmochimica Acta(2006)。基础方法与标定。
- Thomas Letulle 及其同事,〈Multi-proxy assessment of brachiopod shell calcite as a potential archive of seawater temperature and oxygen isotope composition〉,Biogeosciences(2023)。现生贝壳的标定与生物效应。
- Amelia J. Davies 及其同事,〈Isotopic disequilibrium in brachiopods disentangled with dual clumped isotope thermometry〉,Geochimica et Cosmochimica Acta(2023)。单个样本的校正与西摩岛化石。
- Barbora Křížová 及其同事,〈Clumped isotope reordering kinetics in rudist fossils: Impact of burial history and paleoclimatic implications〉,Geochimica et Cosmochimica Acta(2025)。阿姆斯特丹自由大学研究成果记录。
- Gregory A. Henkes 及其同事,〈Temperature evolution and the oxygen isotope composition of Phanerozoic oceans from carbonate clumped isotope thermometry〉,Earth and Planetary Science Letters(2018)。石溪大学研究成果记录。
- 诺森伯兰野生动物信托组织,〈Fossil of the month — Gigantoproductus〉。本文化石配图来源。