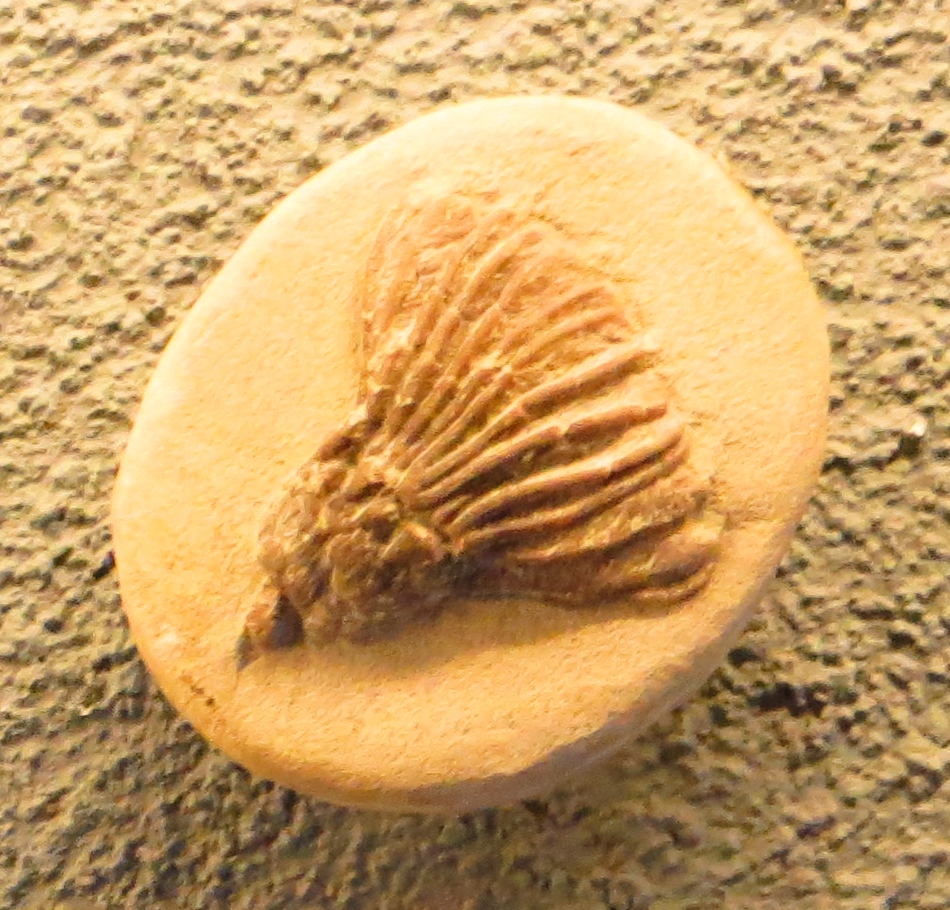
海百合腕的粗细变化,可以记录一段受伤的经历。在英格兰出土的一件志留纪中期标本中,研究者辨认出九条已经开始再生的腕。这件编号为 USNM S8857 的标本属于 Dimerocrinites icosidactylus;受伤之后,它又存活了一段时间,长出了新的骨骼。[1]
值得细看的,正是受伤后继续存活的那段时间。研究化石,通常是从死亡留下的遗骸复原一种生物;再生痕迹则让视线越过死亡,回到更早的时候:某件事发生了,动物活了下来,身体随之作出了反应。至于究竟发生了什么,又发生过多少次,问题就复杂起来。
海百合类包括通常所说的海百合和海羊齿(feather stars),这些海洋动物用腕收集水中悬浮的食物。[2][5] 现生海羊齿的腕还能用于游泳,因此失去腕的影响,也会超出取食范围缩小这一层。[5] 它们恢复身体的化石记录,保存着一次次受损之后重新活动、继续生活的经历。
断裂之后,生长继续
单凭一条缺失的腕,很难了解动物生前的遭遇,因为损伤也会发生在死后。再生腕留下的是另一类证据:骨板大小在某处骤然改变,新的骨板从那里继续向外延伸,或者腕的分枝排列变得不规则。Forest Gahn 和 Tomasz Baumiller 在2010年的综述中,将这类再生能力的历史追溯到了奥陶纪,也就是志留纪之前的地质时期。[2]
这篇综述还区分了再生与修复。增生的骨板可以填补伤处、封闭伤口,原有的排列和形态却未必恢复。有些古生代海百合的萼部,也就是杯状体部,形态复杂,其愈合痕迹与这种修复方式相符。存活下来,身体也可以保留受伤后的新形状。[2]
形态参差的化石因此格外有价值。外形完整匀称的冠部展示着身体的构造;冠部中若有一段骨板突然变小,还能展示变化的先后。那个不太齐整的接合处,连接着动物受伤前后的身体。
对于许多这类损伤,捕食是证据较强的一种解释,与现生海百合类的比较也支持这一点。此外,物理应力和发育过程同样可以造成附肢脱落。如果一个群落中的损伤还呈现一定规律,捕食这一推断就更有说服力。[2]
哪些海百合更常受伤?
美国艾奥瓦州 Le Grand 附近的下密西西比统 Maynes Creek 组,保存着彼此交缠的海百合冠部、茎和附着器官。Gahn 和 Baumiller 在2005年研究这一化石组合时发现,受检标本中有9%至少长出了一条再生腕。这个平均数之下,各物种之间却有很大差别。[3]
数量最多的物种 Rhodocrinites kirbyi,也有着最长的柄和最高的再生频率。体型较大的个体,比小个体留下了多得多的再生痕迹。作者认为,这种分布与捕食者选择醒目猎物的解释相符。这是根据伤痕的分布重建相遇的情形,直接保存下来的攻击画面仍然缺席。[3]
把时间拉长,Baumiller 和 Gahn 在2004年考察了十一处保存异常完好的古生代化石组合,发现腕的再生频率在志留纪向泥盆纪过渡期间显著上升。这个时间段,与能够压碎硬壳的捕食者走向多样化的时期大体重合。反复受伤的记录,为捕食者影响海百合演化增添了证据。[1]
配图中的 Rhodocrinites kirbyi 化石陈列于莱顿的 Naturalis 博物馆,密集排列的腕一同保存了下来。[7]
这些研究的力量,在于把一个细小特征与更广泛的规律联系起来。一条腕记录一个个体的恢复过程;物种、体型和地质时期之间的差异,则让研究者能够继续追问:为什么有些动物更容易留下这样的记录?
幸存者各有愈合的时钟
收集再生腕的记录,收集到的必然都是幸存者。动物若在遭袭时直接死亡,随后愈合的伤痕便无从出现。因此,再生标本较少,可以对应几种情况:袭击较少、防御更有效,或者袭击更致命。Gahn 和 Baumiller 明确提醒,再生频率与捕食强度之间,不能作简单的对应。[3]
还有一层复杂之处:同样的损伤,在不同动物身上保持可辨认状态的时间各不相同。
两人在2013年的论文中提出了一种估算断腕速率的方法,将腕的长度、数量和分枝差异都纳入考虑。受伤个体所占的比例,呈现的是某一时刻的状况;速率关注的,则是损伤发生得有多频繁。从比例推算速率,需要了解正在重新长出的身体。[4]
模型估算,现生海羊齿 Cenometra bella 约每10天发生一次断腕,化石物种 Rhodocrinites kirbyi 则每36天一次。这些数值针对特定例子重建,取决于方法中的假设。它们与直接观测到的时间规律有别,也不能作为现代与古代海洋的通用数值。[4]
现生海百合类说明了愈合速度为何值得关注。Angela Stevenson 及同事在2022年发表的研究中发现,在他们比较的物种里,会游泳的海羊齿,腕的再生速度最高可达不会游泳者的三倍。与研究检验的环境和解剖特征等其他解释相比,游泳能力更能解释物种之间的再生速度差异。不过,在其中一个温带物种内部,较暖的条件确实加快了腕的再生。[5]
这给古生物学研究带来一个实际难题:身体重建得快,伤痕可被辨认的阶段也会更早结束。两个化石组合即使有相近数量的受损腕,背后也可以对应不同的遭袭频率。解读伤痕,还得了解它能以伤痕的样子保留多久。[4][5]
活下来之后,攻击者的意图仍待辨明
即使一处损伤有充分依据归于捕食,仍有一个问题悬而未决:捕食者当时想吃的是什么?
Valerie Syverson 及同事在2018年关于海百合棘刺和再生的研究中,把相遇的结果与捕食者的意图区分开来。海百合存活的解释可以是捕食者试图杀死它却未能得手,也可以是捕食者取食时只吃掉了它的一部分。他们的证据还支持另一种解释:有些捕食者瞄准的是生活在海百合身上的其他生物,包括附着其上的螺类。[6]
由此,相遇的情形有了更多解释,每一个动作却仍待证据还原。受伤的海百合,或是捕食者想吃掉的动物,或是仅被取食了身体的一部分,也可以只是另一只可口动物的栖身处。仅凭再生痕迹,这几种情形仍然难以区分。[6]
再看断腕处向外延伸的细小骨板。相比生动的情景复原,它们确证了一件更扎实的事:受伤之后,生长仍在继续。这只动物最终死去时留下的化石,保存着它曾从更早的一次损伤中活下来的证据。
来源
- Tomasz K. Baumiller 和 Forest J. Gahn,“Testing Predator-Driven Evolution with Paleozoic Crinoid Arm Regeneration.” Science 305 (2004),1453–1455;图1D中的标本照片,以及十一处化石组合的比较。
- Forest J. Gahn 和 Tomasz K. Baumiller,“Evolutionary History of Regeneration in Crinoids (Echinodermata).” Integrative and Comparative Biology 50 (2010),514a–514m;再生痕迹的识别、修复,以及再生能力的久远历史。
- Forest J. Gahn 和 Tomasz K. Baumiller,“Arm regeneration in Mississippian crinoids: evidence of intense predation pressure in the Paleozoic?” Paleobiology 31 (2005),151–164;Le Grand 化石组合,以及受伤频率的解释限度。
- Tomasz K. Baumiller 和 Forest J. Gahn,“Reconstructing predation pressure on crinoids: estimating arm-loss rates from regenerating arms.” Paleobiology 39 (2013),40–51;从再生比例推算断腕速率。
- Angela Stevenson、Tadhg C. Ó Corcora、Christopher D. G. Harley 和 Tomasz K. Baumiller,“Ability to Swim (Not Morphology or Environment) Explains Interspecific Differences in Crinoid Arm Regrowth.” Frontiers in Marine Science,发表于2022年1月13日;现生海羊齿之间的比较。
- Valerie J. P. Syverson、Carlton E. Brett、Forest J. Gahn 和 Tomasz K. Baumiller,“Spinosity, regeneration, and targeting among Paleozoic crinoids and their predators.” Paleobiology 44 (2018),290–305;局部取食,以及对攻击目标的不同解释。
- Ghedoghedo,“Rhodocrinites kirbyi Naturalis.” 2013年8月26日摄于莱顿 Naturalis 的博物馆标本;Wikimedia Commons,CC BY-SA 3.0。