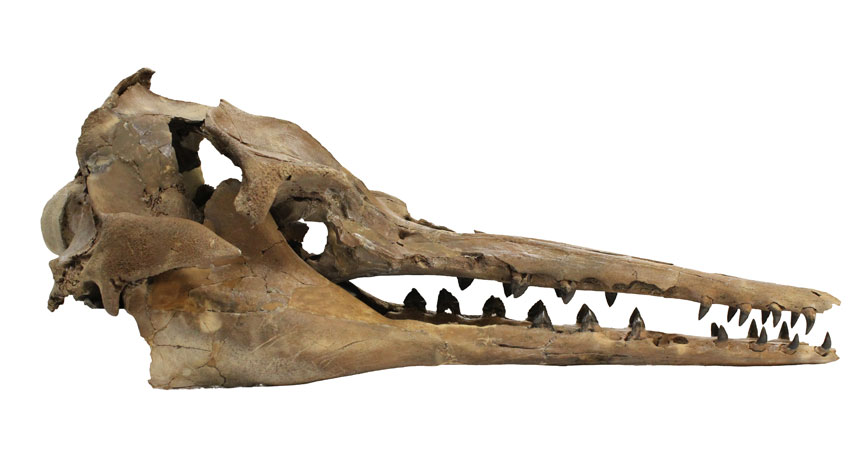
这具头骨有小型海豚般的比例,也带着残骸般的面貌。细长的上下颌仍以尖牙交错咬合,裂隙横过面部,软组织昔日占据的位置只剩敞开的孔洞。照片里的任何部分都发不出咔嗒声,也听不见声音。然而,这具晚渐新世的 Echovenator sandersi 头骨同时保存了一套消失已久的声呐系统两端的证据:骨面曾经容纳并组织发声软组织;更深处,耳蜗的构造能够接收高频声音。[3][8]
这组对应关系一度让演化次序显得已经清楚。假如 Echovenator 与其他异鲸科成员位于齿鲸小目(Odontoceti)第一次分化附近,并且已经带有回声定位所需的装置,那么生物声呐便应当只在接近这一类群起点时出现一次。从抹香鲸到鼠海豚,每一种现生齿鲸都在这份遗产上继续发展。
一块微小的化石耳骨打乱了这幅整齐的图景。它属于异鲸科之外的一种早期齿鲸,位置却更接近通往现生齿鲸的分支;其内部几何形态没有显示超声专门化。这个解剖缺口容纳了两套演化步数相同的历史解释:声呐只起源一次,该动物随后丢失了其中一部分;或者,异鲸科与通向现代齿鲸的谱系各自独立组装出超声回声定位能力。[4]
第二种解释还称不上定论。它揭示了复杂能力如何进入化石记录:保存下来的没有声音,只有分散的组成部分;它们的先后次序取决于解剖、比较,以及一棵位置仍会变动的家族树。
一套声呐系统会留下多种化石信号
现生齿鲸发出声音后听取回声,整个过程远比这两个动作复杂。喷气孔下方名为发声唇的软组织快速产生咔嗒声。气囊帮助隔离并改变振动的方向,额隆中的特化脂肪则把声音向前聚焦。返回的回声沿下颌相关的脂肪组织传向中耳和内耳,这些耳部在声学上与头骨隔离。动物需要产生有效信号、将其对准目标、接收反射,再处理其中的时间延迟。[1][2][6]
这套装置的大部分都会腐烂消失。因此,古生物学家寻找的是关联标志,也就是能够借现生鲸检验其功能联系的骨性特征。面部不对称与鼻区周围的窝状凹陷,指示增大的肌肉和气囊原先可处的位置。凹陷的面部骨面为额隆留出空间。下颌骨外侧的薄骨区,也称声窗(pan bone),与回声抵达耳部的传导路线有关。在致密的耳骨——围耳骨——内部,耳蜗旋转的圈数与紧密程度、次级骨板的延伸范围及其他比例,共同限定了动物能够探测的频率。[1][2][3]
任何一项特征都不能单独等同于回声定位。发声者若听不见自身返回的高频声音,就没有一套能够工作的超声声呐;单独一只适应超声的耳朵,也无法说明叫声从何产生、形态怎样。最有力的化石证据,会把发出与接收声音的两端汇集在同一只动物身上,或汇集在谱系位置已经确定的近亲之间。
异鲸科因而格外重要。它们是一群生存时间较短、地理分布集中的海豚大小干群齿鲸,化石主要来自美国大西洋沿岸平原的渐新世海相岩层。这个科包含 Xenorophus 一类长颌猎手、无牙的吸食者 Inermorostrum,以及面部改造程度更深的 Cotylocara 和 Echovenator。它们没有排成一架直通今天海豚的祖先阶梯,而是齿鲸演化根部附近的早期旁支,位置足以检验最初的齿鲸具备怎样的能力。[6]
两具卡罗来纳头骨让声呐的起源显得很早
第一件决定性的面部证据来自 Cotylocara macei。2014 年,Jonathan Geisler 与同事依据南卡罗来纳州 Chandler Bridge Formation 的一具头骨为它命名。吻突前端的致密骨组织、被解释为气囊所在位置的凹陷、宽阔的上颌骨,以及鲜明的颅骨不对称,合在一起指向一套能够产生并导引高频声音的系统。作者把 Cotylocara 归入异鲸科,并推断初步的回声定位在齿鲸与须鲸分开后不久便已出现。[1]
证据仍有一处重要限制:头骨的内耳保存不足,无法显示它能否接收这种信号。2016 年,两项研究补上了缺失的另一半。Travis Park 与同事使用微型 CT 扫描了来自北卡罗来纳州 Belgrade Formation 的一块孤立异鲸科围耳骨 USNM 534010。它的耳蜗具有支撑组织硬化的构造,与高频听觉相关;不过,多项测量值仍处在更早的鲸类与现生齿鲸之间。这件化石能够听见高频声音,研究者同时推测,它比大多数现代齿鲸保留了更多低频敏感性。[2]
后来的研究把这块孤立耳骨归入 Echovenator。更有说服力的证据来自近乎完整的 Echovenator sandersi 正模标本 GSM 1098:它包含头骨、下颌骨和寰椎,在查尔斯顿附近发现,并由 Morgan Churchill 与同事于 2016 年命名。高分辨率 CT 显示其耳蜗属于能够听见超声的类型,面部则补齐了发声一侧的解剖证据。[3][6] 同一个体由此把声呐回路的两端连在一起。
这些发现之后,年代标尺也变得更加精确。命名研究把 Chandler Bridge Formation 下部的年代约定在距今约 2400 万至 2700 万年;2023 年的一项地层综合研究则引述锶同位素测年,将该地层定在距今约 2470 万至 2450 万年。修订改变了数字,却没有改动演化判断:到了晚渐新世,一个高度独特的异鲸科支系已经拥有高频听觉,面部也围绕生物声呐组织起来。[3][6]
一具来自华盛顿州的小头骨撕开了缺口
假如齿鲸起源后的每个早期分支都拥有同一套基本听觉装置,单一起源仍会是最简洁的解释。标本 CCNHM 1000 却偏偏不配合。它是一具残缺的幼年颅骨,来自华盛顿州渐新世 Pysht Formation,与 Olympicetus 相近;2019 年的一项分析把它恢复为齿鲸干群成员,位置在异鲸科之后、冠群之前。[4]
其内耳与 Echovenator 的区别超过了保存模糊所能解释的程度。微型 CT 重建发现,它的耳蜗盘绕更紧,共有 2.39 圈;一组测量值又把它放在古鲸类及其他缺乏超声专门化的哺乳动物之中。推算出的听觉频率上限更接近须鲸或陆生偶蹄类,距离现生齿鲸较远。研究者指出,幼年身份不会抹去这一信号,因为相关内耳比例很早就会达到接近成年个体的形态。[4]
在这棵谱系树上,相关特征的分布出现断裂:拥有高频听觉的异鲸科之后,是一只位置更靠近冠群、却缺乏明确超声敏感性的动物,再往后才是包含现生回声定位者的谱系。一次起源加上 CCNHM 1000 的一次丧失,与两次独立获得在简约性上相等。2019 年的作者倾向平行获得,因为头骨也讲述了相近的过程:异鲸科与后来的齿鲸分别把面骨向后推移至脑颅上方,这一过程称为颅骨套叠(cranial telescoping);两支还为发声软组织发展出不同的骨性地形。[4]
这组证据的薄弱处同样重要。CCNHM 1000 只有一件标本,个体非常年幼,保存也不完整。分析对于它在 Olympicetus 与其他干群齿鲸之间的确切位置支持度较低。听觉类别来自现生物种的相关关系,再投射到一种没有任何现代精确对应物的解剖形态上。若标本被放到另一分支,其耳蜗得到新的解释,或后续证据显示它曾次生丧失超声敏感性,两次起源的论证都会随之改变。[4]
歪斜的面孔支持多次重塑,证据仍未落定
更多化石强化了一个判断:异鲸科的不对称源于生物本身,埋藏损伤无法解释它。2020 年的一项调查绘制了 162 种现生与灭绝鲸类的三维不对称分布。研究很少找到须鲸与齿鲸共同祖先高度不对称的支持,首次显著变化则出现在早渐新世的异鲸科内部。后来的齿鲸类群又在各自的演化模式下加深不对称。把异鲸科面孔视作现代海豚面孔的原始版本会错过关键区别:深陷的吻突盆和不同寻常的凹窝,指向一套属于它们自己的软组织排列。[5]
2023 年,归入 Xenorophus sloanii 的七具头骨让同一物种内部的规律清楚可见。它们的吻突稳定地向左偏斜约 2–5 度,腭部、牙齿、脑颅和下颌也伴有不对称。多个个体反复出现同一现象,随机挤压难以解释。作者提出一项假说:偏斜的下颌声窗可增大声音抵达两耳的时间差,从而改善定向听觉。这属于功能假说,化石没有保存行为本身;骨骼能够可靠确立的是协调一致且非随机的不对称。[6]
即使是“超声”也有自身的界限。2024 年的一项研究扩大了比较数据集,并用多项耳蜗指标区分普通齿鲸听觉与窄带高频敏感性;后者是部分现生鼠海豚和海豚采用的极端模式。按照这套更严格的分类,Echovenator 落在齿鲸听觉范围内,却无法有把握地划入窄带类别。这项结果没有把它改判为低频鲸类,只显示出证据能够抵达的精度:识别高频听觉能力,比复原一只无人听过的动物所用的确切带宽、峰值频率或咔嗒声类型更容易。[7]
哪些证据能把两条路线重新并成一条
可靠的结论比两种起源故事都要窄。异鲸科具备回声定位能力:它们的面部支持发声,内耳支持接收高频声音。属于它们的版本很早便已组装完成,解剖路线也不同于后来的齿鲸。[1][2][3][5][6] 尚未解决的问题在于,两条路线究竟都始于共同祖先遗传下来的一套初级声呐,还是各自在独立演化中跨过了功能门槛。
最能裁决问题的化石,应来自两个分支之间取样贫乏的区间:一具与 CCNHM 1000 亲缘位置接近、头骨和两侧围耳骨都保存良好的齿鲸化石。若几只同类动物的耳蜗都缺乏超声特征,平行起源将成为很难回避的解释。若它们持续显示处在中间状态的高频系统,华盛顿标本便更接近一次丧失事件,或是一个具有误导性的边缘案例。无论哪种结果,都会用一段演化序列取代围绕单一缺口绘成的性状分布图。
眼下,标题中的“两次”仍是一项待检验的假说;博物馆标签若将它写成定论,时机还早。Echovenator 依然改写了感知能力的历史。它的头骨表明,一只齿鲸可以生活在回声构成的世界里,其面孔、耳部与声学范围仍与现代海豚不尽相同。演化带来声呐的过程,可以是发声与接收分阶段组装,再让二者接通成一套可用系统;这样的接通,或曾发生过不止一次。
来源
- Jonathan H. Geisler、Matthew W. Colbert 与 James L. Carew,“A new fossil species supports an early origin for toothed whale echolocation”,Nature 508(2014)——用于 Cotylocara macei、颅面相关特征与回声定位早期起源的解释。
- Travis Park、Erich M. G. Fitzgerald 与 Alistair R. Evans,“Ultrasonic hearing and echolocation in the earliest toothed whales”,Biology Letters 12(2016)——用于 USNM 534010 的微型 CT 重建及其处于中间状态的高频耳蜗。
- Morgan Churchill、Manuel Martínez-Cáceres、Christian de Muizon、Jessica Mnieckowski 与 Jonathan H. Geisler,“The Origin of High-Frequency Hearing in Whales”,Current Biology 26(2016)——用于 Echovenator sandersi 的描述与 CT 分析。
- Rachel A. Racicot、Robert W. Boessenecker、Simon A. F. Darroch 与 Jonathan H. Geisler,“Evidence for convergent evolution of ultrasonic hearing in toothed whales”,Biology Letters 15(2019)——用于 CCNHM 1000,以及丧失与平行起源两种解释。
- Ellen J. Coombs 等人,“Wonky whales: the evolution of cranial asymmetry in cetaceans”,BMC Biology 18(2020)——用于 162 种现生与化石鲸类的三维不对称分析。
- Robert W. Boessenecker 与 Jonathan H. Geisler,“New Skeletons of the Ancient Dolphin Xenorophus sloanii and Xenorophus simplicidens sp. nov.”,Diversity 15(2023)——用于异鲸科解剖、稳定的不对称、系统发育与地层年代修订(期刊 PDF)。
- Rachel A. Racicot 等人,“Variation in whale (Cetacea) inner ear anatomy reveals the early evolution of ‘specialized’ high-frequency hearing sensitivity”,Journal of Anatomy 246(2024 年在线发表;2025 年刊期)——用于扩充后的耳蜗比较与多指标听觉分类。
- Helen Thompson,“New fossil suggests echolocation evolved early in whales”,Science News(2016)——用于论文发表背景,以及 Echovenator sandersi 头骨题图的来源页面。