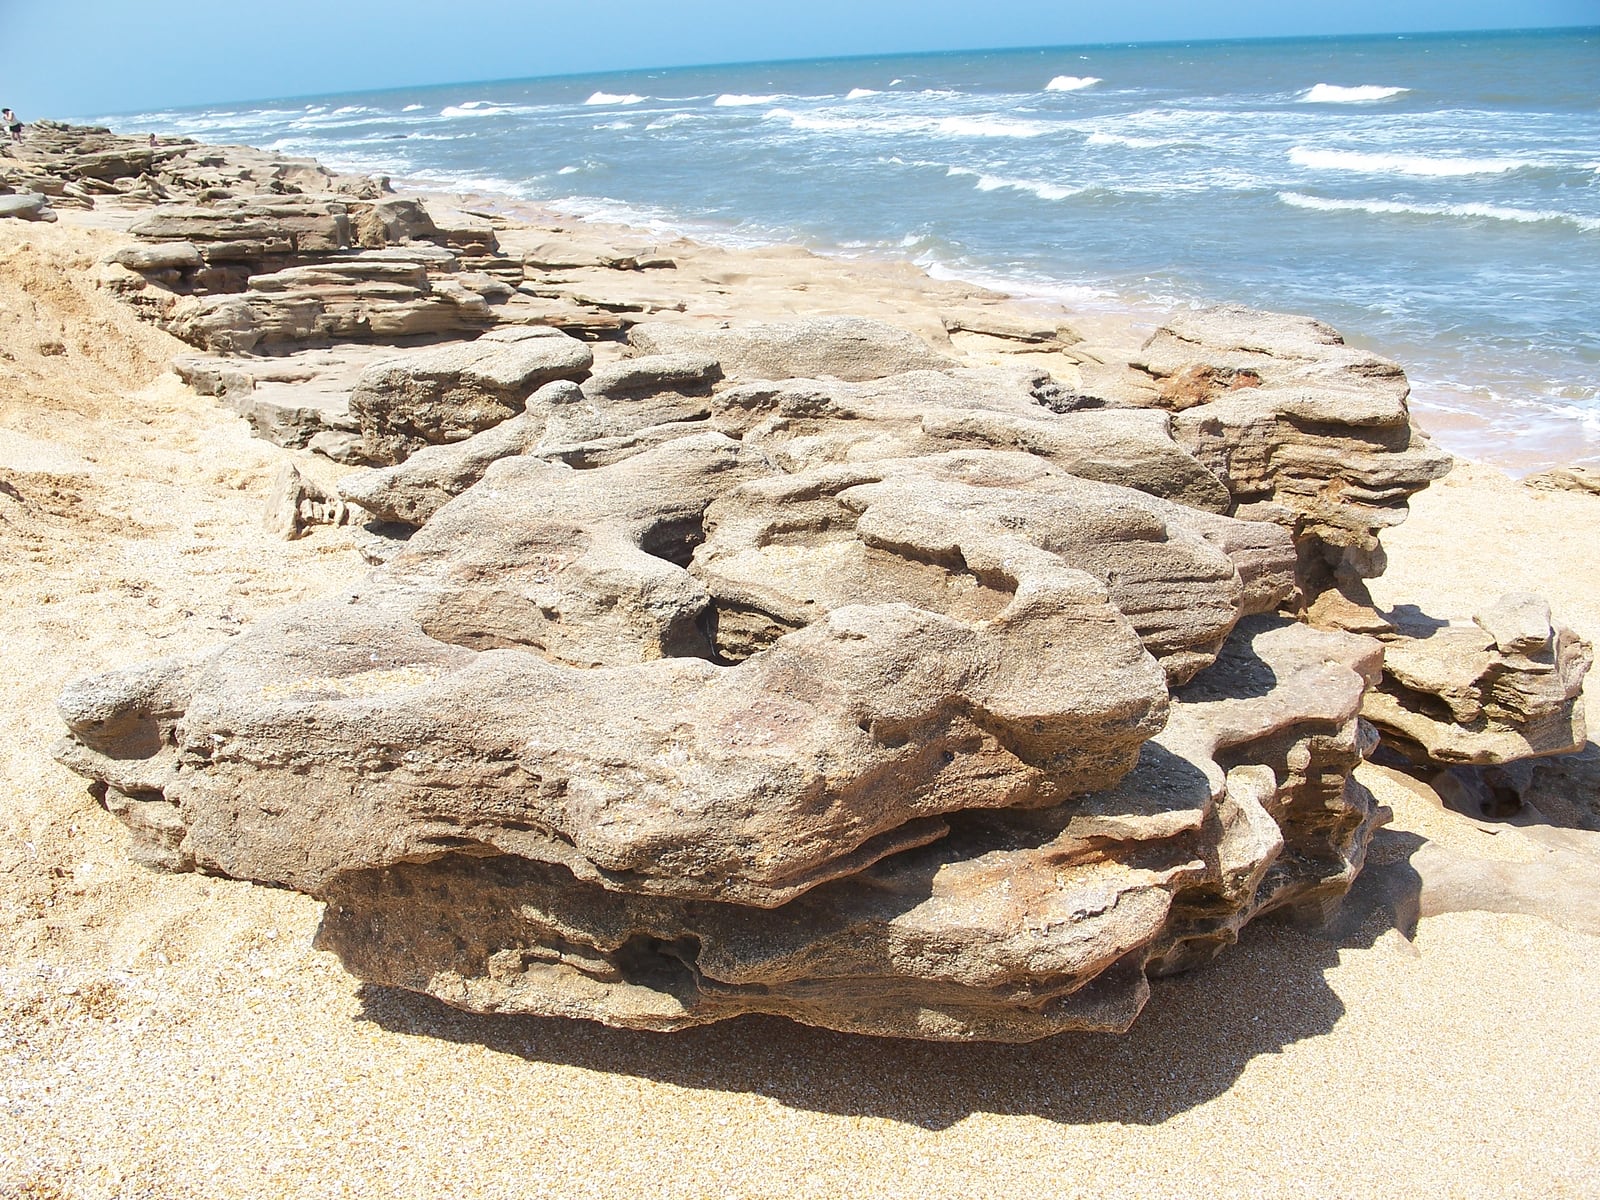
在佛罗里达州的大西洋海岸,原本松散的海滩物质有了坚固的形态:贝壳与碎片胶结成岩,成为贝壳灰岩(coquina)。华盛顿橡树花园州立公园的海浪旁,就露出这样的岩层。美国国家公园管理局介绍,当地的贝壳物质经过一代代累积,再由碳酸钙胶结在一起,形成了这些岩层。[1] 众多生命留下的遗存,就这样汇聚在同一片岩面上。
空间上的紧邻,很容易被读成时间上的重合。看着一层贝壳,人们会想象这些动物曾在同一时刻生活于同一片海底。然而,经久保存的遗骸可以在许多代之间持续累积。古生物学家把这种现象称为时间平均作用(time averaging)。它的意义也延伸到古海洋重建之外:死后堆积的贝壳,还能留下某个群落的证据,即使这个群落在人们开始清点活体之前就已消失。[2]
一把贝壳里,藏着多长的时间?
加利福尼亚湾北端的科罗拉多河三角洲给出了一个答案。在 1998 年的一项研究中,Michał Kowalewski、Glenn Goodfriend 和 Karl Flessa 对四条全新世贝壳脊中的九份样本开展测年,共分析了 165 枚双壳类动物 Chione fluctifraga 的贝壳。他们依据壳体内氨基酸的变化推算年代,并用放射性碳测年结果校准。各份样本内部的贝壳年龄跨度,平均达到 661 年。[4]
这一跨度远大于测年的不确定范围,也远超这种动物的寿命,记录的是贝壳逐渐累积的历史。采集者即使仔细分离出单独一层,拿到的贝壳仍可汇集数百年间的死亡记录。如果再把几个层位的材料合并,取样过程本身就会多添一重混合。[4]
研究还带来一个有用的发现:在 50 年的时间分辨率下,测年结果与贝壳年龄在样本所跨时段内分布较均匀这一判断相符。这些贝壳脊虽然难以还原一次短暂的生态事件,却能持续记录长期占主导的环境状况。[4] 这份漫长的记忆能否派上用场,取决于研究者向贝壳提出怎样的问题。
海底不断搬动自己的档案
动物死后,贝壳的位置仍可改变。2019 年,Adam Tomašových 领衔的一项研究,对南加利福尼亚帕洛斯弗迪斯与圣佩德罗陆架岩芯中的 849 枚贝壳进行了测年。在厚度仅为 10–25 厘米的沉积单元内,两种双壳类动物的贝壳年龄偏差达到 1,000–4,000 年。[5]
作者指出,这一过程涉及埋藏、留存和重新返回浅层。海底近表层的壳体破坏速度很快,埋在其下的贝壳则能长期保存。虾类等深穴居动物可以掘入这些较老的沉积物,将其中的物质带向上方。于是,留存至今的古老贝壳便与较年轻的贝壳一道,进入仍在不断混合的海底沉积物。[5]
两种动物的丰度变化也各有历史。它们向沉积物中贡献的贝壳数量,在不同时间经历增减,进一步拉大了两者贝壳年龄分布的差距。因此,看起来同属一层的动物,其种群繁盛的时期可以相隔很远。[5]
这些测得的年龄偏差对应着特定地点和特定物种,适用范围也限于这些条件;将厘米换算成世纪,还须逐一考察具体沉积记录。由此得到的一般性认识很清楚:判断化石个体是否生活在同一时期,需要空间邻近之外的证据。
当差异成为证据
把活体动物与附近的死贝壳放在一起比较,最初很容易被视为对贝壳记录的检验。如果二者的物种组成与丰度有出入,搬运或选择性破坏便会成为记录失真的备选解释。差异的另一种解释,则是活体群落自身已发生变化。
Susan Kidwell 在 2007 年检验了群落变化这一解释,所用的是来自河口与潟湖的 73 组软体动物数据。在有记录表明人类活动增加了营养盐输入的环境中,活体组合与死亡组合的平均一致程度较低。一种解释是,死贝壳保留着早期群落的组成,而现生动物群随环境条件改变而发生了变化。[6]
这里观察到的是相关关系,其他人类活动的压力也可参与其中。因此,若要据此判定营养盐污染,还需其他证据。同样,高度吻合的结果也不足以确认环境未受干扰:经历足够长的时间,旧贝壳会逐渐消失,或被替代群落留下的大量遗骸淹没。[6]
当贝壳年龄、各物种的生态需求和独立的环境历史记录共同指向一种解释时,这样的比较才更有意义。活体与死壳之间的差异,也就成为值得追查的线索,促使研究者继续查阅这份档案。
早于监测记录的群落
南加利福尼亚在 2017 年提供了一个鲜明的例子。Tomašových 与 Kidwell 研究了大陆沿岸陆架上的 Laqueus 属腕足动物死壳。腕足动物也有壳,在分类上与双壳类软体动物有别。如今这片陆架以泥质生境为主,而这些死壳与扇贝死壳,共同指向一个曾经广泛分布的贝壳砾屑生态系统,其中的动物附着生活,身体位于海底之上。[7]
对 190 枚腕足动物壳体的测年显示,它们在当地的历史至少可追溯至 4,000 年前,壳体产出量随后在十九世纪急剧下降。在该研究开展时,测年样本中所有壳体的年龄都在约一百年以上。作者将这次衰退与泥沙淤积加剧联系起来,而淤积又与沿海土地利用强度增加、尤其是牲畜放牧有关。这一因果解释依据的是时间上的对应与环境证据;对放牧影响的判断仍属于推断,壳体本身没有直接测量这种影响。[7]
这个生态系统的消失早于二十世纪的科学调查。如果把那些调查作为基线,起点就已经落在一次重大转变之后。留存下来的贝壳,让更早的生态系统重新进入视野。[7]
经过时间平均作用的生物组合,对短暂事件的分辨能力会有所损失,同时也延长了我们能够观察的时段。[2] 读懂这样的记录,需要兼顾两种时间尺度:遗骸累积了多久,以及所研究的变化发生得有多快。岩石中彼此相触的贝壳,生前可以相隔数百年。这段时间距离,恰好也能成为它们的价值所在。
资料来源
- 美国国家公园管理局,马坦萨斯堡国家纪念地网站“Geologic Activity”——当地贝壳灰岩的形成,以及华盛顿橡树花园州立公园的露头。
- Susan M. Kidwell 与 Adam Tomašových,“Implications of Time-Averaged Death Assemblages for Ecology and Conservation Biology”,Annual Review of Ecology, Evolution, and Systematics 44(2013),539–563——跨时段汇集的遗骸与历史生态信息。
- Ebyabe,“Washington Oaks Gardens coquina01.jpg”(2007),维基共享资源——照片原件、拍摄地点及署名信息,采用 CC BY 2.5 许可。
- Michał Kowalewski、Glenn A. Goodfriend 与 Karl W. Flessa,“High-resolution estimates of temporal mixing within shell beds: the evils and virtues of time-averaging”,Paleobiology 24(1998),287–304——科罗拉多河三角洲贝壳脊的贝壳测年。
- Adam Tomašových 等,“Millennial-Scale Age Offsets Within Fossil Assemblages: Result of Bioturbation Below the Taphonomic Active Zone and Out-of-Phase Production”,Paleoceanography and Paleoclimatology 34(2019),954–977——南加利福尼亚岩芯测年与贝壳混合。
- Susan M. Kidwell,“Discordance between living and death assemblages as evidence for anthropogenic ecological change”,PNAS 104(2007),17701–17706——活体与死亡组合的比较,以及据此解读环境时的适用限度;全文见 PubMed Central。
- Adam Tomašových 与 Susan M. Kidwell,“Nineteenth-century collapse of a benthic marine ecosystem on the open continental shelf”,Proceedings of the Royal Society B 284(2017),20170328——腕足动物测年,以及据此推断的贝壳砾屑生态系统消失过程;论文由美国国家海洋和大气管理局(NOAA)网站收录。