相对于动物的体型,这条前肢显得格外粗壮:宽阔的肩胛骨、结实的肱骨,下方连着前臂的两根骨骼。站在博物馆展柜前,很容易顺着这副骨架想象一个动作:爪子探入土中,前肢向后拉动。Fruitafossor windscheffeli 的骨骼让古生物学家有充分理由,将它复原成一种善于挖掘的哺乳动物。至于它挖掘时寻找什么,还需要进一步推断。[1]
研究从编号 LACM 150948 的标本开始。这是罗哲希(Zhe-Xi Luo)与 John Wible 在 2005 年描述的正模标本,即该物种命名所依据的标本。它出土于美国科罗拉多州弗鲁塔附近的莫里森组,距今约 1.5 亿年,保存了下颌、不完整的颅骨,以及约 40% 的颅后骨骼。这些遗存足以让研究者把同一个体的口部与四肢联系起来考察,其余大部分骨骼尚未找到。[1]
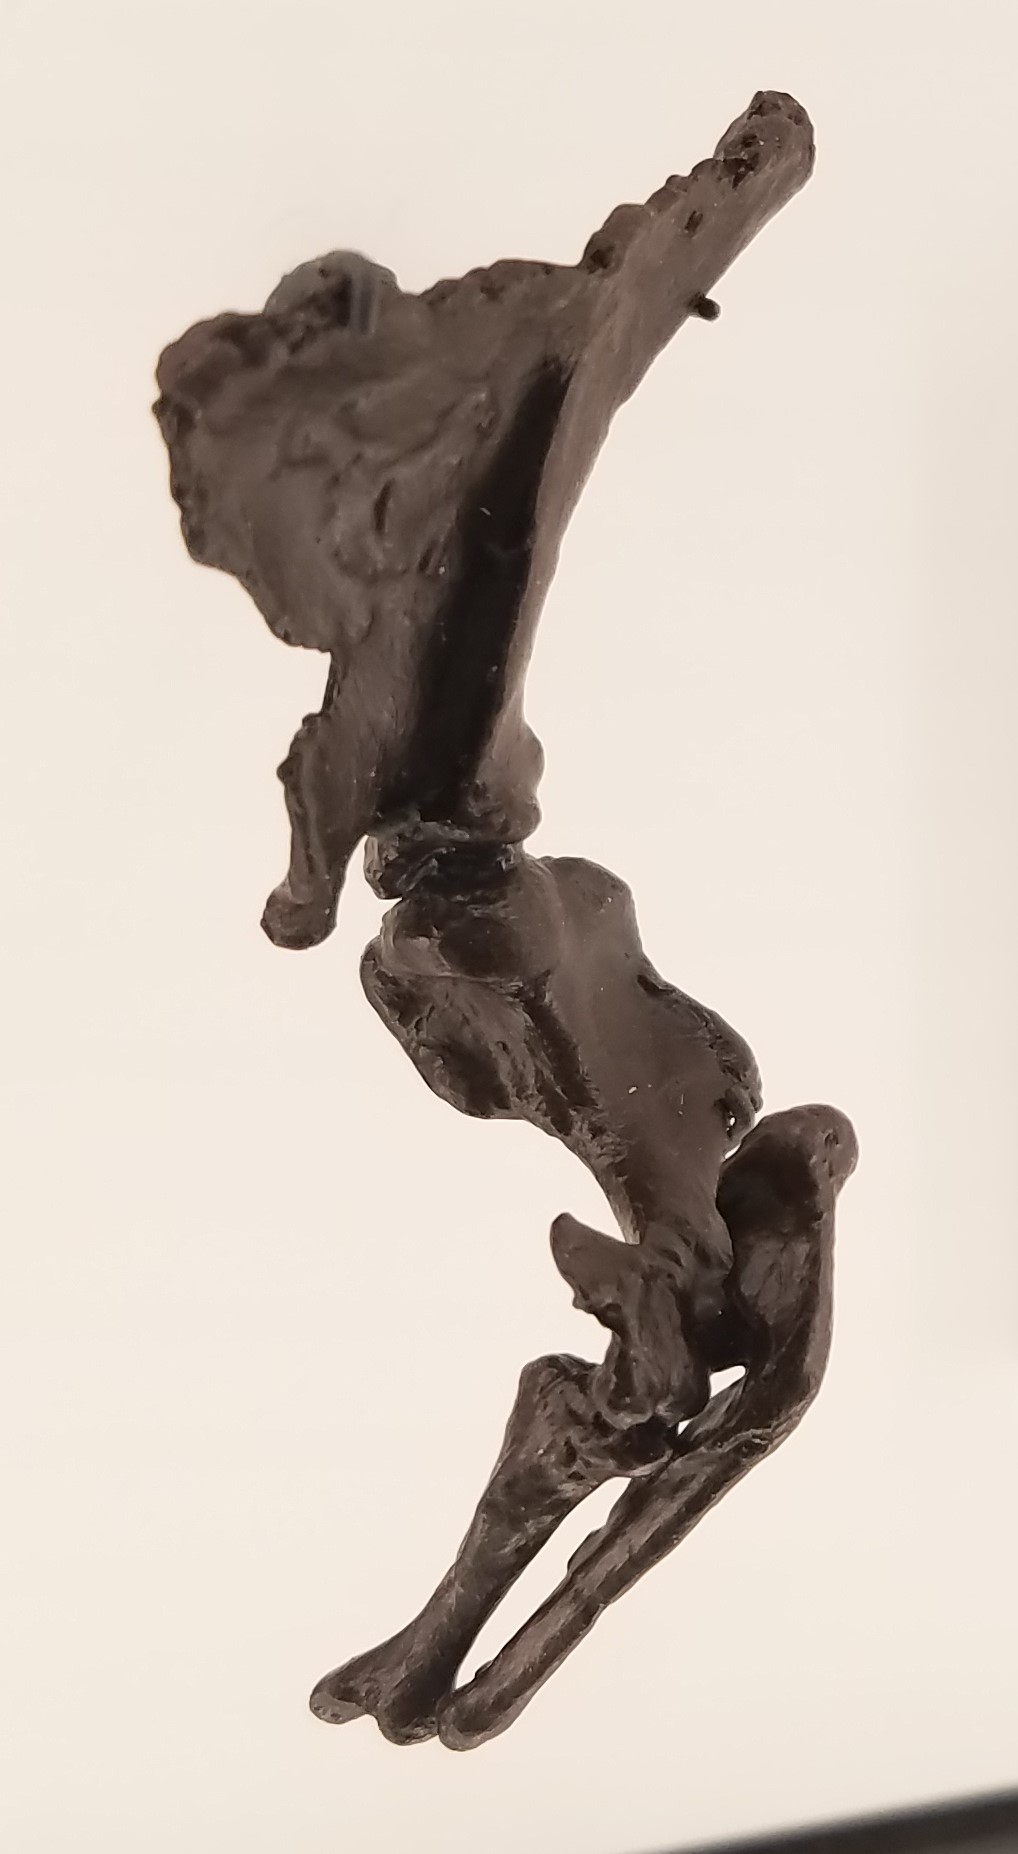
从肩部看起
肢体的多个部位若都指向同一种功能,挖掘习性的解释就更有依据。罗哲希在 2015 年论述哺乳动物肩部演化时,专门提到了 Fruitafossor 特化的前肢,以及肩胛骨上显著的大圆肌附着区。大圆肌参与上臂运动。骨骼保留的是肌肉的附着部位;肌肉本身有多大、如何活动,还要借助比较来复原。[3]
关节同样值得细看。Fruitafossor 保留了一个斜向排列、部分呈鞍形的肩关节窝,其关节面朝向身体侧方。这种布局与人们熟悉的现生有胎盘哺乳动物肩部有所区别。罗哲希将这些特征放进肩部演化的历史中考察:各块骨骼及其连接方式反复改变,逐渐组合出不同的肩部形态。[3]
想象这种动物如何运动,也因此多了一层趣味。若把现代鼹鼠的一整套动作直接套用在它身上,就会忽略它自身的关节形态。有依据的复原,应当从保存下来的肌肉附着面与关节连接处出发,再判断这些部位允许怎样的活动。骨骼可以有力地指向某项动作的用途,完成这项动作时究竟怎样挥动前肢,仍有待厘清。
沿着前肢,看到牙齿
颊齿给出了第二条线索。Patrick O'Connor 及其同事在 2019 年的一项比较研究中描述,Fruitafossor 的颊齿齿冠呈管状,缺少釉质,每枚牙齿都由一根下端开放的齿根支承。对侏罗纪哺乳动物来说,这种牙齿形态很少见。作者将它与年代较晚的非洲哺乳动物 Galulatherium 作了比较:后者的颊齿也形态简单、缺少釉质,两者颌骨的其他部位则有显著差异。[4]
这样的比较,让一个醒目的特征回到了整副骨骼之中。相似的牙齿能够在不同谱系中独立演化出来。2019 年的研究明确将这些相似之处视为趋同演化;这也符合最初的解释,即 Fruitafossor 与犰狳、土豚之间的相似特征同样源于独立演化。[4]
这些现生动物也为食性推断提供了参照。卡内基博物馆在 2007 年的一篇文章中介绍,罗哲希设想 Fruitafossor 会挖掘白蚁及其他无脊椎动物,并以植物作为补充食物。这一复原所容纳的食谱,本就比单吃白蚁更宽。牙齿接近食虫动物,四肢又适合挖掘,两者合在一起,让食虫假说有了合理依据;它们留下的证据,仍未记录一顿实际的进食。[5]
这里有一处需要分清:挖掘说明的是如何取得食物,食性说明的是吃下了什么。土壤里可以藏着多种可食之物。前肢与颌骨应当共同约束对同一种动物的复原,同时各自回答不同的问题。
专食白蚁,需要充足的白蚁供应
Thomas Vida 及其同事在 2025 年发表的研究,加入了一项生态层面的检验。他们结合 4,099 种现生哺乳动物的食性资料与社会性昆虫的化石记录,考察专食蚂蚁和白蚁的习性如何多次独立出现。早期生态系统能否为这些取食者持续供应食物,是他们提出的问题;对于曾被视作早期专食者的动物,论文也明确讨论了 Fruitafossor。[6]
他们关注的是食物供应是否充足而稳定。一个昆虫群体的成熟过程可长达数年;仅有白蚁存在的证据,还不足以证明当时拥有丰富、能够持续补充的食物来源。作者发现,这些早期食性解释获得的证据支持程度不一,同时也保留了已灭绝的社会性昆虫曾形成大型群体这一假设。[6]
这项质疑也有适用范围。研究中的哺乳动物分析没有纳入专门取食昆虫的化石类群,因此未直接复原 Fruitafossor 的食性。研究也未证实侏罗纪不存在白蚁。它指出的是一项尚缺证据的生态条件,单凭解剖特征的比较无法补上这一环。[6]
至此,这种动物的各项特征已有连贯的解释,生活史仍有部分留待探索。最初的分析将 Fruitafossor 置于哺乳动物的一条早期分支上,并认为它与现生有胎盘类掘土动物的相似特征各自独立演化而来。[1] 它展现出的特化习性,帮助研究者改变了对那些与恐龙共同生活的哺乳动物的认识。[5] 回到展柜前,那条前肢仍让人联想到一次有力的掘土动作。随它带出土面的究竟是什么,这个问题值得继续保留。
资料来源
- Zhe-Xi Luo 与 John R. Wible,〈Fruitafossor windscheffeli〉,得克萨斯大学 DigiMorph(2006)——正模标本、产地、保存状况、CT 记录及 2005 年首次描述论文的摘要。
- Neil Pezzoni,〈Fruitafossor forelimbs Deep Time.jpg〉(摄于 2020 年),Wikimedia Commons——放大至实物两倍的翻模标本 USNM PAL 618346 照片,采用 CC BY 4.0 许可。
- Zhe-Xi Luo,〈哺乳动物肩部的起源〉(“Origin of the Mammalian Shoulder”),载《脊椎动物演化中的重大转变》(Great Transformations in Vertebrate Evolution,芝加哥大学出版社,2015),第 167–187 页,尤其是第 177 页——作者提供的书籍章节,讨论肩部解剖与功能。
- Patrick M. O'Connor 及其同事,〈坦桑尼亚西南部上白垩统土仑阶—坎潘阶 Galula 组的一种新哺乳动物〉(“A new mammal from the Turonian–Campanian (Upper Cretaceous) Galula Formation, southwestern Tanzania”),Acta Palaeontologica Polonica 第 64 卷(2019),第 65–84 页——“Comparisons with Fruitafossor” 一节讨论牙齿、颌骨与趋同演化。
- 匹兹堡卡内基博物馆,〈配角的故事〉(“Tales from the Supporting Cast”,2007 年冬季)——罗哲希对推测食谱的介绍,以及这一发现如何影响研究者对早期哺乳动物多样性的认识。
- Thomas Vida、Zachary Calamari 与 Phillip Barden,〈白垩纪—古近纪界线后蚂蚁与白蚁的增多,为哺乳动物趋同的食性特化奠定基础〉(“Post K-Pg rise in ant and termite prevalence underlies convergent dietary specialization in mammals”),Evolution(2025)——研究方法、生态限制及对已提出的中生代专食类群的讨论;作者提供的 PDF。