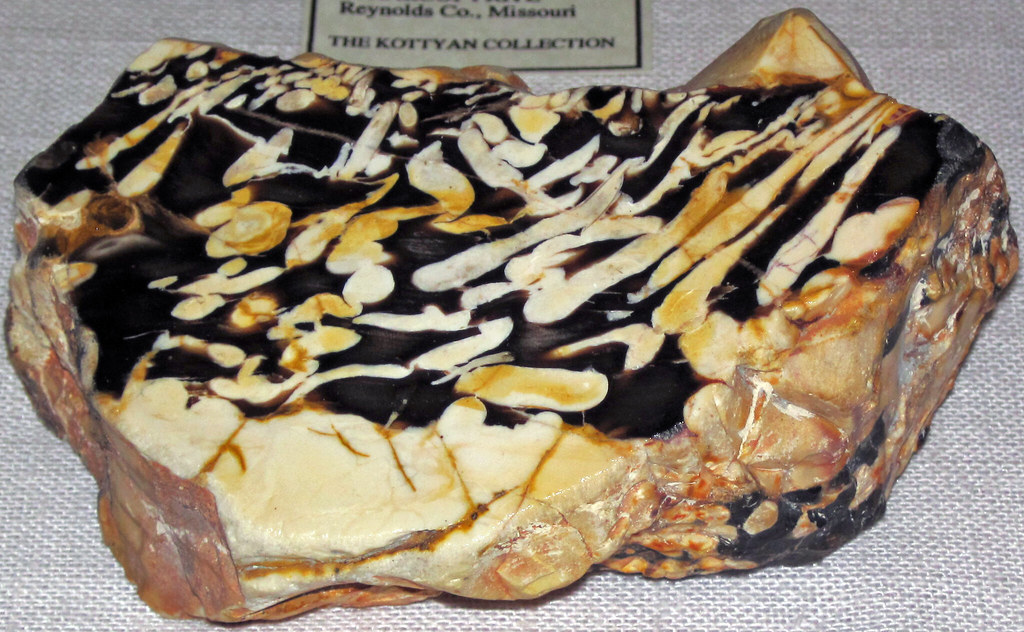
奶油色的椭圆斑散落在深色石头里,看着几乎能入口,收藏者便把这种化石叫作“花生木”。James St. John 拍摄的这件标本产自西澳大利亚的 Windalia 放射虫岩,深浅反差来自两种不同的物质。深色木材已被石英矿化,浅色斑块则是沉积物,填进了双壳类在早白垩世钻出的孔道。[1]
动物挖走了树木的一部分,沉积物占据了空处,这番变化留下的纹样保存至今。要读懂这个过程,观察的重点与辨认一枚贝壳有所不同。植物长出的木材内部,保存着动物活动的证据。Teredolites 这个名称属于钻孔本身,依照独立的遗迹化石体系分类;具体由哪一种双壳贝类钻凿,还需另行辨认。[2][3]
沿着孔道看进去
圆形孔口呈现的,只是三维孔道的一面。真正有用的问题关乎孔道在木材内部如何延伸:有多长,在哪里变宽,是否弯曲,孔壁上是否附有一层矿物质。即使原来的栖居者早已消失,研究者仍能据这些特征比较不同的钻孔。[2]
Simon Kelly 和 Richard Bromley 在 1984 年的研究中,将木质材料里的烧瓶状钻孔归为 Teredolites,将岩石及其他坚硬矿物基底中形态相近的钻孔归为 Gastrochaenolites。这套分类同时考察痕迹的形态与被钻穿的材料。孔洞“住在哪里”,也是描述的一部分。[2]
木材钻孔这一类内部,形态差别很鲜明。Teredolites clavatus 较短,呈棒槌状;传统上称作 T. longissimus 的长型钻孔,则能在木材中延伸出狭窄、曲折的通道。抛光面以不同角度切过这些通道,表面露出的椭圆因此只是重建孔道的线索,完整形态仍待追索。[3]
一棵树先后迎来不同住客
意大利多洛米蒂山脉 Puez 组的一段化石树干,保存了一连串格外清楚的痕迹。Evelyn Kustatscher 及其同事在 2013 年的研究中,将这段木材归入 Agathoxylon 属,并推测它与南洋杉类针叶树亲缘接近。周围沉积物中的海生微体化石,将其埋藏时间限定在早白垩世阿尔布期。[4]
显微镜下可见的小室中留有粪粒,被归于甲螨活动的产物。作者认为,这些痕迹留在树木仍活着的时候,或它在陆地上死亡后不久。较大的钻孔略微弯曲,向内逐渐变宽,直径可达约一厘米。部分孔道内的沉积物含有海生微体化石。研究者将这些钻孔归为 T. longissimus,据此推断树干后来曾在海上漂流,随后下沉并被掩埋。[4]
这段旅程,是几类证据合在一起才显现出来的。木材的解剖特征帮助辨认植物,不同的钻蛀痕迹区分曾在其中栖居的动物,沉积物则交代了环境。由此重建的是事件先后的次序,具体何时开始漂流、漂流了多远,仍缺少依据。[4]
埋藏地点也要有自己的证据
考察一整套沉积层时,同样需要这样区分证据。Andrew Oligmueller 和 Stephen Hasiotis 在 2024 年研究科罗拉多州白垩系达科他群时,描述了 Plainview 组中的 T. clavatus。他们结合钻孔痕迹、岩石及其沉积构造,将相关环境解释为潮间带至潮下带。[5]
研究中的另一些木材带有浅浅的钻孔,被归于蜉蝣若虫的活动。研究者推断这些痕迹源自淡水环境,其中部分木材最终却进入了海洋环境。两类钻孔分别出现在不同的木材上。对于带有蜉蝣痕迹的木材为何避开了后来的双壳类侵入,作者提出的一种解释是迅速掩埋。[5]
一段木材因此能够带着原栖息地的证据,抵达另一个地方。它埋藏时所处的环境,与此前供动物栖居的经历,需要分别重建。一件漂亮标本离开原生层位后,痕迹仍在,连接这两段历史所需的部分证据却随之失落。
一条河带来的海水判读难题
船蛆是一类身体细长的双壳动物,许多常见的木材钻孔都出自它们之手,因此常被视为海洋影响的证据。J. Reuben Shipway 领衔的 2019 年研究,使这种直接推断更难成立。研究者在菲律宾阿巴坦河的一段淡水河道中,记录到 Lithoredo abatanica 钻蛀石灰岩;在同一淡水环境的水下木材中,还发现了钻木船蛆 Nausitora。[6]
后一项观察与化石木直接相关:钻木船蛆也能生活在淡水中。研究者同时提醒,这类淡水适应出现的时间仍待厘清;这个现代实例,对于地质历史上何时出现类似行为,尚不能给出答案。[6]
它划定了钻孔证据的解释限度。像 Puez 那样,当其他证据也指向海洋时,化石钻孔可以参与重建海洋环境;单凭钻孔,水体盐度仍无从确定。守住这一差别,这项有用的环境线索才能得到恰当使用。[6]
文献里为何出现两个名称
这些痕迹还牵出一场分类分歧。Stephen Donovan 在 2017 年在线发表的论文中,将细长、曲折的类型另立为 Apectoichnus longissimus,着重指出它与较短的 Teredolites clavatus 之间的差异。Oligmueller 和 Hasiotis 在 2024 年反对这一拆分,认为两者共有的特征足以支持同属分类,因此仍将它们都保留在 Teredolites 中。[3][5]
两个名称由此沿用至今。它们分类的是钻孔痕迹,钻孔动物的物种身份仍需其他证据辨认。[3][5]
再回头看澳大利亚的那件标本,浅色椭圆就容易读懂了。它们保存着空间先被占据、继而腾空、随后重新填满的过程。树木给动物栖居的地方,动物钻蛀木材,埋藏又保存了它们留下的改动。沿着这些改动追索,便能还原出仅看树干外形难以读出的历史。[1]
资料来源
- James St. John,〈Teredolites bivalve borings in fossil conifer wood〉。Flickr(2017);原始照片、产地与标本说明。
- Simon R. A. Kelly、Richard G. Bromley,〈Ichnological nomenclature of clavate borings〉。Palaeontology 27(1984),793–807;奠定分类基础的研究。
- Stephen K. Donovan,〈A new ichnogenus for Teredolites longissimus Kelly and Bromley〉。Swiss Journal of Palaeontology 137(2018),95–98;2017 年 12 月在线发表。
- Evelyn Kustatscher、Howard Falcon-Lang、Alexander Lukeneder,〈Early Cretaceous araucarian driftwood from hemipelagic sediments of the Puez area, South Tyrol, Italy〉。Cretaceous Research 41(2013),270–276。
- Andrew R. Oligmueller、Stephen T. Hasiotis,〈An ichnotaxonomic assessment of the Cretaceous Dakota Group, Front Range, Colorado, USA, and its comparison to other Western interior seaway deposits〉。Paleontological Contributions 23(2024);木材钻孔与分类研究。
- J. Reuben Shipway 及同事,〈Shipworm bioerosion of lithic substrates in a freshwater setting, Abatan River, Philippines: Ichnologic, paleoenvironmental and biogeomorphical implications〉。PLOS ONE 14(2019),e0224551。