化石中的动物很少会留下一份账单,记下与身边生物共处的代价。小小的伴生者究竟取走了食物、占据了空间,还是仅仅借了一处方便的落脚点,往往难有定论。两者的躯体得以一同保存,相处的方式却已消失。要把其中一方认作寄生者,就得找回比附着痕迹更隐蔽的关系:一方以另一只动物的损失为代价,从中获益。[1]
这一区别改变了我们观察远古生态系统的方式。在熟悉的“谁吃了谁”之外,还有一些更少受到关注的问题:谁截走了食物,谁住在另一只动物体内,谁让宿主耗费资源来容纳一个闯入者?化石留下的零散线索,各自保存着这段关系的一部分。下面三个案例展示了这些线索所能还原的内容,也保留了每类证据各自的解释限度。
在别人的餐桌旁占个位置
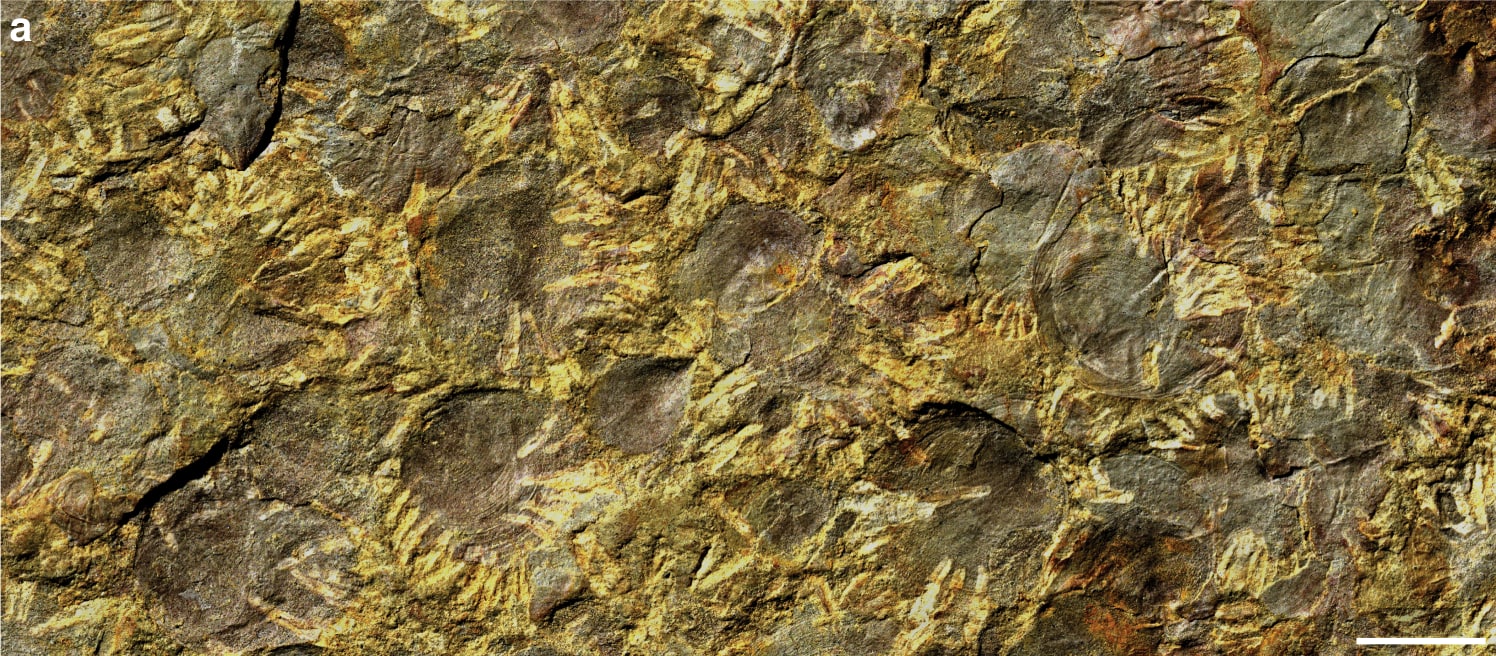
中国乌龙箐组早寒武世的 Neobolus wulongqingensis 化石上,附着着逐渐收细的管体,人们对管内居住者仍知之甚少。这些管体的开口反复呈现出朝向壳缘的排列,面向推定的腕足动物摄食水流。[2]
Zhifei Zhang 及其同事在 2020 年的研究中,对比了 205 个带管体的个体和 224 个未带管体的个体。研究者根据壳体尺寸估算体重,带管体一组的平均值约低 26%。这项差异与管口朝向共同支持了盗食的解释:管内居住者占据的位置,有利于截取腕足动物摄食活动所汇集的颗粒。[2]
保存下来的壳体可供测量,估算的生物量则被用作衡量适合度的替代指标。繁殖情况与被窃取的食物都缺少直接的观察记录。两类证据合在一起,让寄生解释比单凭附着痕迹更有依据:在取食上获益的合理解释,与宿主之间可测量的差异相互呼应。[2]
宿主在入侵者周围写下痕迹
泥盆纪菊石类化石为研究这类关系留下了另一条线索。有些标本的内模上保存着细小凹坑;所谓内模,就是原先壳内空间留下的石质铸型。在 2011 年的研究中,Kenneth De Baets、Christian Klug 和 Dieter Korn 检查了一批材料,其中包括来自摩洛哥的新标本,并将这些凹坑与原本朝向壳内的突起联系起来。[3]
这些突起是附壳珍珠,即壳质形成的囊状包裹物,其中许多包着细小的管体。研究者将其内部构造和排列方式与现生软体动物中的类似构造比较,结果支持了寄生起源的解释。宿主曾在壳内某种东西的周围增生壳质。因此,内模上的一个凹坑,就能以反向形态保存动物应对体内异物的痕迹。[3]
研究提出了吸虫类(trematodes,亦称 flukes)寄生的解释,但标本中缺少软组织化石,寄生者的身份与生活史仍有待确认。[3] 身体的反应能够清晰地保存下来,引发反应的生物却仍然身份未明。壳体记下了宿主如何容纳异物,至于住客是谁,线索尚有缺口。
躯体消失后留下的虫卵
第三类记录来自动物排出的物质。Paula Dentzien-Dias 及其同事在 2013 年报道了一枚来自巴西 Rio do Rasto 组的螺旋状粪化石,也就是已经成为化石的粪便。这枚标本的年代被描述为距今约 2.7 亿年,内含鱼类残骸,以及一簇被解释为绦虫卵的微小构造,共 93 个。[4]
粪化石的形态和内含物支持其排出者为鲨鱼的解释。在薄片中,这些卵聚成一条细长的簇,形似绦虫生殖节片内的卵群,其中一枚保存了推定处于发育中的幼虫。它们的形态支持绦虫卵的鉴定,具体属于哪个现生类群则仍难确定。[4]
这样一件外表寻常的东西,竟保存了如此贴近生命内部的记录。寄生成虫的躯体已经缺失,繁殖留下的虫卵却记录了它与宿主消化道的联系。宿主究竟因此受损多少,标本仍缺少可供衡量的证据。确认感染的存在与查明感染的后果,是两件不同的事;这枚标本保存了前者的证据,后者仍待解答。[4]
栖居者体内,还有栖居者
Tommy Leung 在一篇 2015 年在线发表、2017 年刊于 Biological Reviews 的综述中指出,寄生者在生态系统中十分重要,化石记录却极为稀少。保存下来的躯体、虫卵和宿主损伤,分别为发现寄生关系留下了不同的机会。他也提醒,一些看起来由寄生者留下的特征,用自由生活的生物同样可以解释。[5]
这项提醒为研究确立了审慎的尺度。Baumiller 和 Gahn 更早的综述将问题归结为三方面的证据:双方是否长期关联,疑似寄生者是否从中受益,宿主是否因此受损。[1] 一件保存精美的标本,有时也仅能回答其中一个问题,这正是持续追问这些问题的价值所在。身体位置接近,只是观察的起点;要确定彼此的生态关系,还需要证据与论证。
把管体、附壳珍珠和虫卵放在一起看,已经灭绝的动物便少了几分孤立。对于另一种生物,每个躯体都蕴藏着取食或栖居的机会。由此留下的化石记录详略不一:有时保存的是寄居者,有时是宿主的反应,有时则是代价在统计数据中的痕迹。细察这些差别,我们便能重建一个栖居者更为密集的远古世界,同时给尚缺证据之处留出空白。
资料来源
- Tomasz K. Baumiller 和 Forest J. Gahn,〈Fossil Record of Parasitism on Marine Invertebrates with Special Emphasis on the Platyceratid-Crinoid Interaction〉。The Paleontological Society Papers 8(2002),195–210;识别寄生关系的判据。
- Zhifei Zhang 及其同事,〈An encrusting kleptoparasite-host interaction from the early Cambrian〉。Nature Communications 11(2020),2625;壳体测量、摄食解释及图 1a 中的标本照片。
- Kenneth De Baets、Christian Klug 和 Dieter Korn,〈Devonian pearls and ammonoid-endoparasite co-evolution〉。Acta Palaeontologica Polonica 56(2011),159–180;附壳珍珠的构造及寄生者鉴定的限度。
- Paula C. Dentzien-Dias 及其同事,〈Tapeworm Eggs in a 270 Million-Year-Old Shark Coprolite〉。PLOS ONE 8(2013),e55007;标本 UFRGS-PV-429-P 及寄生虫卵的证据。
- Tommy L. F. Leung,〈Fossils of parasites: what can the fossil record tell us about the evolution of parasitism?〉。Biological Reviews 92(2017),410–430;2015 年在线发表。新英格兰大学机构知识库记录。