长腿在石板上向四周伸展,身体后端却更值得细看。这只名为 Palaeoisopus problematicus 的海蜘蛛,来自德国早泥盆世的洪斯吕克板岩,腹部很长,分成数节。它的附肢扁平,与现生海蜘蛛纤细、呈圆柱状的腿也有差别。熟悉的海蜘蛛类群,曾有过这般陌生的体形。[2]
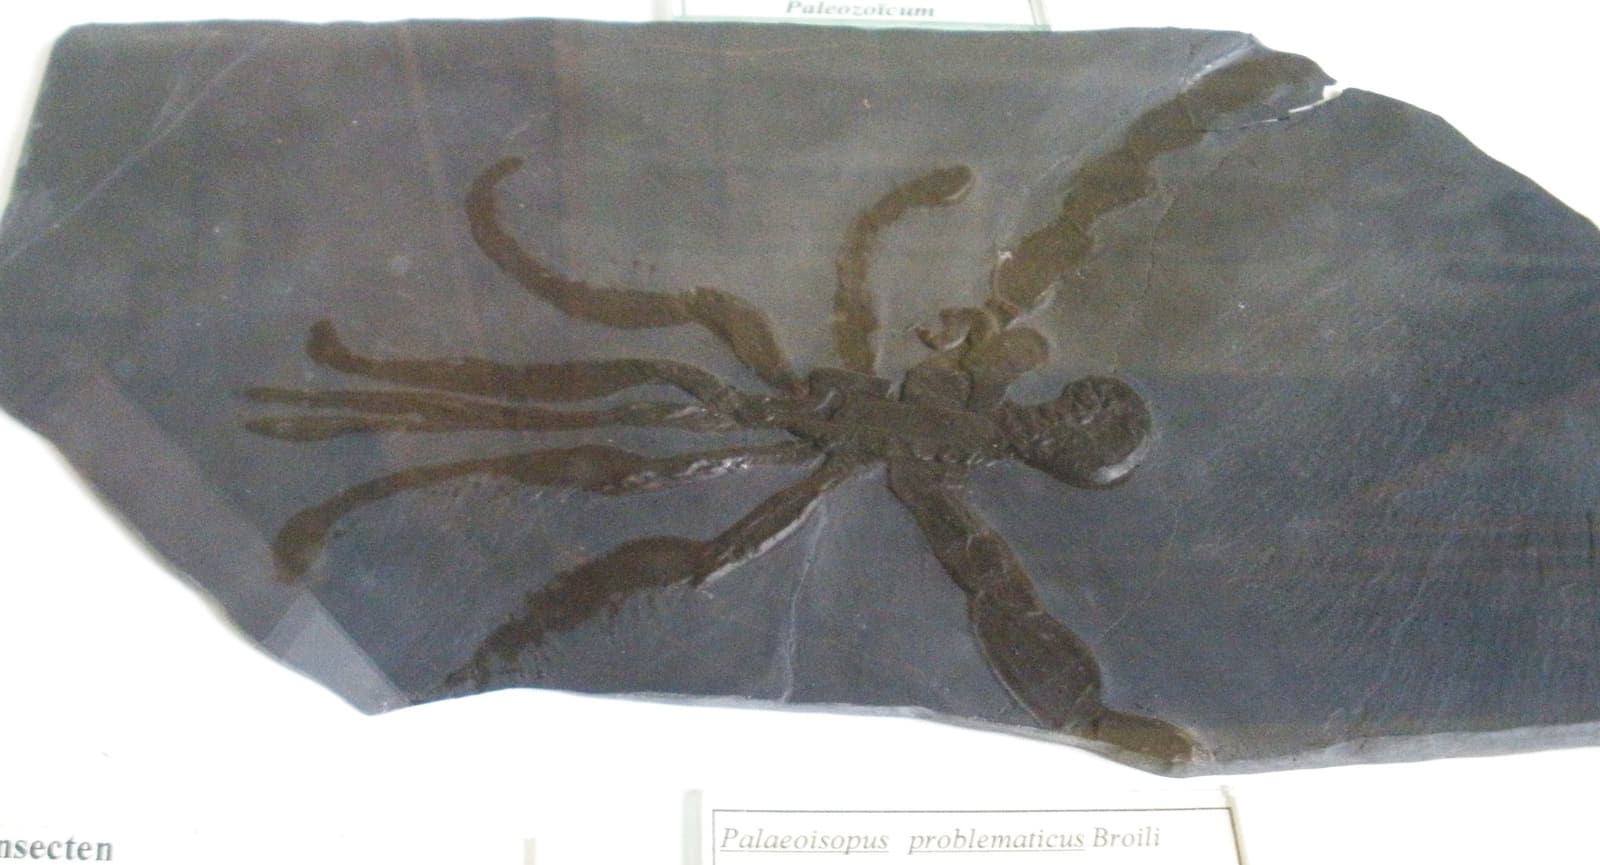
这样的差异引出两个问题:延续至今的海蜘蛛谱系,何时具备了今天独特的身体形态?它早期历史中又有多少尚未留下可供我们辨认的记录?近期研究表明,第一个问题的答案,也会改变我们回答第二个问题时能够使用的证据。
哪些近亲属于冠群?
现生海蜘蛛全部属于 Pantopoda。它们的躯干很小,末端只有一个退化、未分节的突起。化石海蜘蛛中,有些身体后部具有关节,腿的构造也与现生种类不同,因此,辨认出一只海蜘蛛化石之后,它能否归入同一类群,还要进一步考察。[3]
古生物学家把现生成员的末次共同祖先及其全部后裔称为冠群。在这个共同祖先之前便已分出的灭绝近亲,则属于它的干群。一件干群化石与现代动物的亲缘关系可以十分清楚,同时保留着现存类群共同继承的特征以外的性状。它也可以是现代动物的旁支近亲。
有了这一区分,尾部的意义便超出了解剖形态本身。归入冠群的化石,可以为冠群的起源划定一个最小年龄;若把它移到更早分出的支系上,这一年龄约束就随之撤去。化石的地质年龄保持原样,改变的是它能够为谱系树上的哪一部分确定年代。
两件小小的标本,改写旧有归属
Haliestes dasos 来自赫里福德郡志留纪的科尔布鲁克代尔组,距今约 4.3 亿年。最初的描述只依据一件标本。2023 年,Derek Siveter 及其同事研究了另外两件标本:他们逐层磨去极薄的化石材料,每磨一层便拍摄照片,再据此重建动物的身体。[3]
新标本帮助研究者厘清了一处重要歧义。标本之间的差异支持三个体节相互活动的解释,从而将后端的分节与单一突起上的弯曲区别开来。腿基部周围的环状构造,又为它与泥盆纪类群之间的相似性增添了一项证据。作者将 Haliestes 移出冠群,归入范围更广的已灭绝海蜘蛛近亲之中。[3]
一件化石即使年代更久远,它与所有现生海蜘蛛共同祖先的亲缘远近,仍须依据所保存的性状判断。在这里,新增标本削弱了用这件熟悉的化石约束冠群起源年代的理由,同时也让它的解剖特征透露出更多信息。
泥盆纪记录还展示了体形上幅度更大的变化。2024 年,Romain Sabroux 及其同事重新研究了距今约 4 亿年的洪斯吕克动物群,将 Palaeoisopus 宽阔的附肢解释为适于游泳的特征。这一功能推断依据的是形态,化石直接保存的证据限于身体形状,游动过程仍在推断之中。他们在更广泛的复核中,尚未找到足以令人信服的证据,将已知的泥盆纪海蜘蛛归入 Pantopoda。[2]
这样的归类仍容许一种情形:已灭绝的支系,曾与早期冠群谱系生活在同一片海洋,而后者在岩石中的记录仍待辨认。将已知标本排除出某个类群,说明的是这些标本的归属;那个类群是否曾在其他地方存在,仍需另行考察。
侏罗纪岩石中熟悉的科
法国罗讷河畔拉武尔特的中侏罗世化石,带来了另一类证据。2023 年的一项研究运用 X 射线显微断层扫描,以及从不同方向打光拍摄的照片,辨认出此前检查中遗漏的细节。Sabroux 及其同事将所研究的海蜘蛛归入冠群。[4]
头部周围细小的附肢在其中起了重要作用。Colossopantopodus boissinensis 具有触肢(palps)和抱卵肢(ovigers),这些特化附肢的构造将它与现生的 Colossendeidae 科联系起来。Palaeoendeis elmii 显示出与 Endeidae 科的亲缘关系。第三个物种 Palaeopycnogonides gracilis 则结合了现生各科中均未见到的特征组合,研究者为它单独设立了一个科。[4]
因此,这批侏罗纪化石既保存了能够辨认的、延续至今的支系,也保存了一个如今已无现生成员的支系。冠群之内同样有走向灭绝的分支。化石物种即使归入现存的科,也仍是与现代近亲有别的物种。
这些化石为现存类群的辐射分化留下了若干带有年代的参照点:当这些动物被埋藏时,某些支系已经彼此分开。至于分化发生的确切时刻,这些参照点只能给出时间上的约束。
标本之间,更古老的历史
Morena Nava 及其同事在 2025 年的一项分子钟分析中,检验了这段缺失的历史。他们结合了 198 个海蜘蛛分类单元的遗传数据,以及依据修订后的解剖认识所选取的化石校准点。研究估计,冠群起源的时间区间约为距今 4.35 亿至 3.67 亿年,远早于那些侏罗纪化石。[5]
这是一项带有不确定性的模型估计,与发现一件新的古生代标本属于两类证据。尽管先前研究采用的化石归属已经重新评估,这次分析仍推算出一个起源古老的冠群。对于漫长年代中的化石空白,作者认为,这与海蜘蛛很难保存为化石的特点相符。[5]
由此呈现的演化图景,是一棵分支繁多的谱系树,远比一条从有尾化石通向现代海蜘蛛的简单线索复杂。那些形态独特、后来灭绝的类群,或曾持续生存,同时现生各科的祖先已在别处分化。解剖特征帮助辨明化石能够支持的亲缘关系;遗传变化经过这些化石的校准,则帮助估算其间相隔的时间。
再看石板上向四周铺开的附肢。认出它属于海蜘蛛,只是起点。更能说明问题的细节,恰在那些陌生之处:分节的身体后端、桨状的附肢,以及从石头中辨认出的一枚小小附肢。海蜘蛛的家族历史远比单件化石所见的更为庞大,而这些细节决定了这只动物究竟能照亮其中的哪一部分。
参考来源
- Ghedoghedo,《Palaeoisopus problematicus》,Wikimedia Commons(摄于 2011 年)——照片、本登巴赫产地及泰勒博物馆收藏地点。
- Sabroux 及其同事,《洪斯吕克板岩泥盆纪海蜘蛛的新认识(节肢动物门:皆足纲)》,PeerJ(2024)——解剖特征、游泳功能解释,以及对泥盆纪冠群证据的重新评估;全文。
- Siveter 及其同事,《志留纪海蜘蛛 Haliestes 新发现的形态特征及其意义》,Papers in Palaeontology(2023)——新标本、具有关节的躯干末端及干群归属;附全文的机构文献记录。
- Sabroux 及其同事,《法国罗讷河畔拉武尔特海蜘蛛动物群的新认识(节肢动物门:皆足纲;侏罗纪:卡洛夫期)》,Papers in Palaeontology(2023)——头部附肢、科级归属及化石校准;附全文的机构文献记录。
- Nava 及其同事,《海蜘蛛演化历史的时间尺度(节肢动物门:皆足纲)》,Evolutionary Journal of the Linnean Society(2025)——采用修订后化石校准的分子定年,以及由此推断的冠群古生代起源。