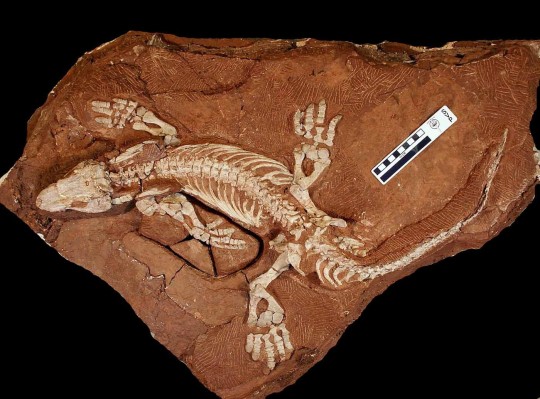
1998 年,古生物学家 Amy Henrici 从德国布罗马克(Bromacker)采石场的地面撬起一块岩石,翻过来,一只骨骼仍然相连的脚露了出来。在这处化石资源格外丰厚的地点,这只脚带来了找到身体其余部分的希望。骨骼果然就在附近。这副骨架后来成为 Orobates pabsti 的正模标本,也就是物种名称所依据的那件标本。[1]
二十年后,研究者向这副骨架提出了另一个问题:它怎样行走?为寻找答案,他们把化石解剖、古代足迹、对现生动物的观察和机器人结合起来。每一种证据与方法,都从不同角度检验设想中的运动方式。[3]
Orobates 生活在距今约 2.9 亿年的早二叠世,远早于恐龙出现的年代。它是产自坦巴赫组(Tambach Formation)的四足植食动物,化石保存极为完好,很适合用来开展一项困难的实验:让多种证据共同筛选,考察哪些运动方式仍然合理。[1][5]
先给骨骼留出活动空间
照片中的骨架编号为 MNG 10181,收藏于哥达。骨骼虽然相连得十分完整,仍留有埋藏过程造成的损伤。压扁后的头骨形状与生前有别,制作运动模型之前,需要先处理这些变形。[2]
在 2015 年的重建中,John Nyakatura 及其同事利用计算机断层扫描(CT),在数字模型中把骨骼与周围岩石分离。他们修补断裂、校正变形,并将保存下来的肢骨作镜像复制。部分椎骨和肋骨的建模还参考了其他材料及最初的解剖描述。因此,完成后的骨架既包含测量所得,也包含明确说明的复原取舍。[2]
考察关节时,这一区分尤为要紧。在模型中转动复原的肱骨,直到它碰上肩带,可以估计骨骼本身所允许的活动极限。若把软骨、韧带和肌肉计入,活动范围还有进一步收窄的余地;动物平常迈步时,实际使用的活动幅度也可以小于关节允许的全部范围。复原的关节为行走实验划定了范围,具体怎样运动则仍待检验。[2]
足迹限定落脚位置
布罗马克还保存着被归于 Orobates 的足迹列,命名为 Ichniotherium sphaerodactylum。趾头之间的相对长度,是把足迹与骨架联系起来的依据之一。这种归属判断来自解剖特征的比对,身体化石与足迹列之间并没有同一个体留在自身行迹终点的直接对应关系。[1][5]
足迹记录了脚接触地面的位置。腹部离地多高、躯干怎样弯曲、脚在空中划过怎样的路线,都在足迹的直接记录之外。想象两个人踩着同一组铺路石前进:落脚点相同,迈步过程仍可以各不相同。步态重建的困难,就藏在这段落脚点之间的移动里。
团队的运动学模型把候选运动同时放到数字化足迹列和骨架上检验。一种候选步态既要让脚落在合适的位置,也要保持骨骼相连,避免骨骼之间出现解剖上无法成立的碰撞。研究者调整身体离地高度、脊柱向两侧弯曲的幅度和四肢运动模式,在多种方案之间比较,让检验超出一段视觉上可信的动画。[3]
再让地面施加反作用力
几何关系只是第一道检验。一连串姿势即使符合骨骼形态,所需的力是否合理、身体能否保持平衡,仍有待检验。动力学把质量、重力以及身体与地面的接触,一同纳入运动问题。[3]
Nyakatura、Kamilo Melo 及其同事在 2019 年的研究中,把动力学模拟与实体行走模型 OroBOT 结合起来。他们从机械功率需求、稳定性、与现生动物实测地面作用力的吻合程度,以及与化石足迹的吻合程度来评估步态。这些标准各自检验不同的薄弱处:脚能落到正确位置的步态,也会出现其他指标表现不佳的情况。[4]
机器人让这种区别变得具体。它的脚必须踏上真实表面,摩擦和平衡会影响每一步的结果。电机与古代动物的肌肉各有特性,作者也明确承认,模型省略了真实的肌肉和其他软组织。一次成功的机器人试验,能够说明在模型假设成立的条件下,某种候选步态在力学上可行;灭绝动物的完整生理功能仍超出了模型的还原范围。[5]
因此,最有价值的成果,是一组有依据的运动方案,以及对其他方案为何表现欠佳的解释。机器人走得起来,只有放到这些比较之中,才成为证据。
用仍在行走的动物检验方法
现生蝾螈、石龙子、鬣蜥和凯门鳄为研究提供了比较材料。它们的四肢都向身体两侧伸展,步态却各不相同,适合用来区分普遍的力学限制与某一种现生动物特有的运动习惯。[3]
研究者还在蝾螈和凯门鳄身上检验这套重建方法:假定动物已经灭绝,只依据其解剖形态和足迹展开重建。方法成功还原了两者差异鲜明的运动方式。与制作一段好看的 Orobates 动画相比,这项验证更有分量,因为它检验的是:面对能够独立观察到的实际运动,这套程序能否辨别其中的差异。[5]
对于 Orobates,综合结果更支持一种身体相对抬高、平衡良好、机械能消耗较低的步态,优于预先假定的身体低伏、四肢侧伸的姿态。这里的“抬高”指身体如何离地,四肢仍向两侧伸展,与哺乳动物把腿收在身体下方的姿态有别。研究重建的是证据允许的合理步态,与记录某一次二叠纪的行走经历仍有距离。[4]
步态与演化树,各有各的证据
原始论文把 Orobates 视为羊膜动物干群成员,位于冠群之外;冠群包括现生哺乳动物和爬行动物,鸟类也在其中。按照这一系统发育位置,它所具备的陆地行走能力提示,这类运动方式在冠群分化之前就已出现。[4]
这一位置仍有争议。Jasper Ponstein 及其同事在 2024 年的分析中,在多数规则合意树上把阔齿龙形类(Diadectomorpha)置于羊膜动物内部、与哺乳动物分支相邻的位置;采用其他方式汇总他们得到的系统发育树时,结果未能重现这一关系。Sean Modesto 同年另行发表的综述,则质疑了把这些动物移入冠群所依据的证据。[6][7]
这种区别影响着步态研究应如何用于解释演化历史。即使 Orobates 所在的分支位置发生变化,解剖与力学检验仍有参考价值。相对于更大类群的起源,这种步态究竟何时首次演化出来,还需要步态重建之外的证据。
回到 Henrici 当年翻出的那只脚,研究的线索便重新聚拢。骨骼限定形态,可以相互比照的足印限定接触位置,实验则检验动物怎样从一次落脚移向下一次落脚。在这些观察之间,一种步态逐渐显现,等待质疑、修正与再次检验。
来源
- Amy Henrici,《布罗马克计划第五篇:Orobates pabsti,帕布斯特的山地行者》,卡内基自然历史博物馆——发现经过、足迹归属,以及 Dave Berman 拍摄的正模标本照片。
- John A. Nyakatura 等,《干群羊膜动物 Orobates pabsti(阔齿龙科)的三维骨骼重建》,PLOS ONE(2015)——标本复原、质量与关节活动度。
- 洛桑联邦理工学院(EPFL)仿生机器人实验室,“OroBOT”——研究团队对运动学建模、现生动物比较和步态动力学测试的介绍。
- John A. Nyakatura、Kamilo Melo 等,《以逆向工程重建干群羊膜动物的运动方式》,Nature 565(2019)——综合实验及其演化解释。
- Nyakatura、Melo 及其同事,《常见问题》(2019),EPFL——造迹动物的归属、模型局限,以及利用现生动物开展的验证。
- Jasper Ponstein、Mark J. MacDougall 与 Jörg Fröbisch,《阔齿龙形类的综合系统发育与分类修订,兼论四足动物植食性的起源》,Royal Society Open Science(2024)。
- Sean P. Modesto,《冠群与干群羊膜动物相互关系中的问题》,Frontiers in Earth Science(2024)——对若干冠群归属方案的批判性评估。