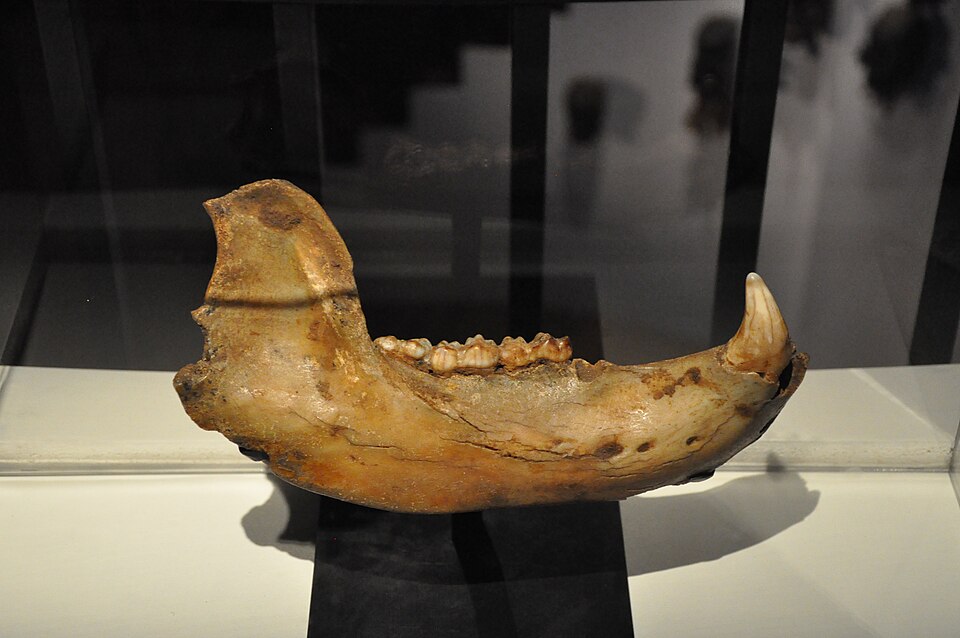
看洞熊的犬齿,人们往往先留意齿尖:弯曲的轮廓、尖端的形状,还有长年使用留下的损伤。牙根周围则保存着另一种记录。覆盖牙根的组织称为牙骨质(cementum),其中的薄层能够保留生长的先后次序。若能正确解读这些层次,就能推知动物活了多久,以及死亡时正值季节循环中的哪一段。[9]
研究化石时,问题很少细到如此贴近一个个体的一生。地质定年将牙齿放进漫长的地质时间里,牙骨质分析则追索这颗牙齿所属生命内部的时间。难处在于,研究者需要证实眼前的条带确实保存着他们所理解的生物节律。
牙根怎样留下生长记录
牙骨质参与牙齿的固着。许多年龄研究采用的是无细胞牙骨质,其中嵌入的纤维将牙根与牙周韧带相连。新组织不断在牙根周围累积,逐层留下的记录能够保存以一年左右为周期的生长变化。[4]
这些条带有其物质基础。在 1993 年的一项实验中,Daniel Lieberman 研究了接受受控饮食的山羊。显微镜下,牙骨质的差异反映出胶原纤维排列方向的变化,这些变化与咀嚼受力有关;矿化程度的差异则反映了组织的生长。因此,一道条纹记录的是组织本身的性质,日期还需要从这些性质中解读。[2]
这一原理也解释了这种方法的吸引力与难处。若摄食、生长和季节条件有规律地反复出现,留下的图案就能成为一份历法。怎样读懂它,取决于对动物及其组织的了解。观察到一条醒目的线只是起点;将它认定为年度分界,还需要检验相应的生物学依据。
数年轮之前,先找准计时起点
在许多哺乳动物牙骨质研究中,一条较宽的生长带与一条较窄的缓慢生长带合在一起,代表一个年度周期。若把每一条明带和暗带都各算作一年,就会误读这种成对关系。估计年龄时还要补上发育阶段的时间:在所研究的牙齿开始记录生长层之前,动物已经生活了一段时间。[3]
研究者可以制作实体薄切片,让生长层序显露出来。另一种办法是同步辐射 X 射线断层成像,它能在三维数据中分辨内部层次。借助这种方法,研究者可以从不同视角追踪一条疑似分界,减少对单张实体切片的依赖。[9]
无论采用哪种工具,条带的年度含义都需要另行论证。在 2024 年关于侏罗纪哺乳动物生长的研究中,Elis Newham 及其同事以已知年龄的现生哺乳动物研究为依据,并与化石颌骨中的生长标记比较,检验牙骨质生长层的年度周期。他们也严格筛查了保存状况:完成成像的 582 件标本中,219 件适合计数牙骨质生长层。[4]
这番筛选本身也是研究结果的一部分。牙齿化石的外形有时仍然清晰可辨,用来读取年岁的精细组织却已消失。反复测量受损组织,得出的读数即使相互吻合,缺失的记录仍然空着。已经消失的组织层,成像技术再精良也无法还原。
最外缘回答的是另一个问题
估计年龄,要读取累积下来的整个层序;估计死亡季节,则要仔细看它的末端:最后一条生长带是刚刚开始,已经充分发育,还是后面又出现了一条缓慢生长带?要回答这些问题,原始外缘必须保存下来,对生长节律的季节解释也必须可信。[3]
这份历法还随地理位置而变化。2019 年一项针对西班牙北部 Covalejos 洞穴有蹄类牙齿的研究指出,在欧洲不同地区,现生马鹿长出缓慢生长带的时间各有不同。因此,研究者对将古代条带精确对应到日历日期持审慎态度。活跃生长或缓慢生长这类组织状态,与月份之间没有一套处处通用的对应关系。[3]
洞熊的研究说明,即使只能区分宽泛的季节,也有研究价值。Natalya Prilepskaya 及其同事研究了来自俄罗斯欧洲部分、乌拉尔和高加索的 12 枚犬齿化石,论文发表于 2022 年。两名观察者分别依据牙骨质独立估计年龄与死亡季节,并以继发性牙本质作进一步核对。研究最终采纳了 10 枚牙齿的季节判定,另外 2 枚因判读分歧被排除。采纳的结果中,6 枚指向暖季死亡,4 枚指向寒季死亡。[5]
这些获采纳的读数,对完全以冬季入洞越冬解释这批遗骸的看法提出了挑战。按这些读数,部分洞熊也在较暖的时节死于洞穴。不过,从一组选定犬齿得出的 10 项季节估计,尚不足以确定各个洞熊种群在一年中使用洞穴的频率。作者呼吁进一步研究具体洞穴的情况。[5]
研究由此有了更具体的问法。面对满是熊骨的洞穴,冬季图景仍需证据;研究者可以检验每只动物何时进入这批死亡遗骸组合。牙齿缩小了推断的范围,完整的死亡经过仍有待其他证据补足。
侏罗纪牙齿里的十四年
同一种方法还能追溯到远早于冰期洞穴的时代。2020 年,Newham 及其同事研究了威尔士裂隙堆积中早侏罗世哺乳动物近亲的牙齿,分别属于摩根兽(Morganucodon)和孔耐兽(Kuehneotherium),年代距今约 2 亿年。两个属可供判读的样本分别有 34 件和 27 件,由三名观察者独立判读生长层。[6]
最高的计数支持 Morganucodon 至少活到十四年、Kuehneotherium 至少活到九年。这些数字估计的是样本所记录的最长寿命,与平均预期寿命有别;出土个体中年龄最大的一只,也未必代表该物种寿命的绝对上限。研究还指出,外侧生长层受损可使年龄估计偏低。[6]
作者进一步利用寿命推断代谢特征,由此引发了一场见诸论文的争论。Shai Meiri 与 Eran Levin 指出,体型差异和高代谢动物的寿命表现,使寿命与代谢之间的关系变得复杂。Newham 团队则为其在野生陆生物种之间所作的比较进行了辩护。[7][8] 这里仍须分清两类证据:生长层计数能为生理特征的讨论提供依据,但不能直接测出代谢率。
一枚牙根因而能为几个层次的解释留下线索。生长层可用于估计年龄,最后的外缘可用于判断季节,动物之间的比较则可用于进一步认识生活史。每向前一步,都要增加相应的假设。只要这些推理步骤清楚可见,化石上窄窄的一圈组织,就能让一个个体的一生逐渐清晰起来。
资料来源
- Philippe Alès,《法国多尔多涅的洞熊颌骨》(2015),Wikimedia Commons:照片来源与 CC BY-SA 4.0 许可。
- Daniel E. Lieberman,《牙骨质微观结构中保存的生活史变量》,Science(1993):山羊受控饮食实验与条带的物质基础;NCBI 摘要记录。
- Carlos Sánchez-Hernández 及其同事,《结合有蹄类牙齿磨耗与牙骨质分析,揭示尼安德特人居住 Covalejos 洞穴(伊比利亚北部)的季节性》,Scientific Reports(2019):成对的生长层、发育时间校正、样本制备与季节节律的地区差异。
- Elis Newham 及其同事,《侏罗纪哺乳动物辐射演化期间哺乳动物生长模式的起源》,Science Advances(2024):牙骨质解剖、年度周期检验与保存状况筛查。
- Natalya E. Prilepskaya、Olga P. Bachura 与 Gennady F. Baryshnikov,《欧洲最东部洞熊的死亡季节与死亡年龄》,Boreas(2022):犬齿样本、独立判读、季节判定及生态推断的限度。
- Elis Newham 及其同事,《早侏罗世干群哺乳动物类似爬行动物的生理特征》,Nature Communications(2020):威尔士化石、同步辐射成像、寿命估计与外侧生长层缺失的问题。
- Shai Meiri 与 Eran Levin,《重新审视用于推断早期哺乳形类代谢率的生活史与形态替代指标》,Nature Communications(2022):对从寿命推断代谢的批评。
- Elis Newham 及其同事,《回复〈重新审视用于推断早期哺乳形类代谢率的生活史与形态替代指标〉》,Nature Communications(2022):对比较框架的辩护。
- Elis Newham 及其同事,《同步辐射 X 射线断层成像揭示灵长类牙骨质生长层中的生活史》,Journal of the Royal Society Interface(2020):生长节律,以及二维切片与三维成像的区别。