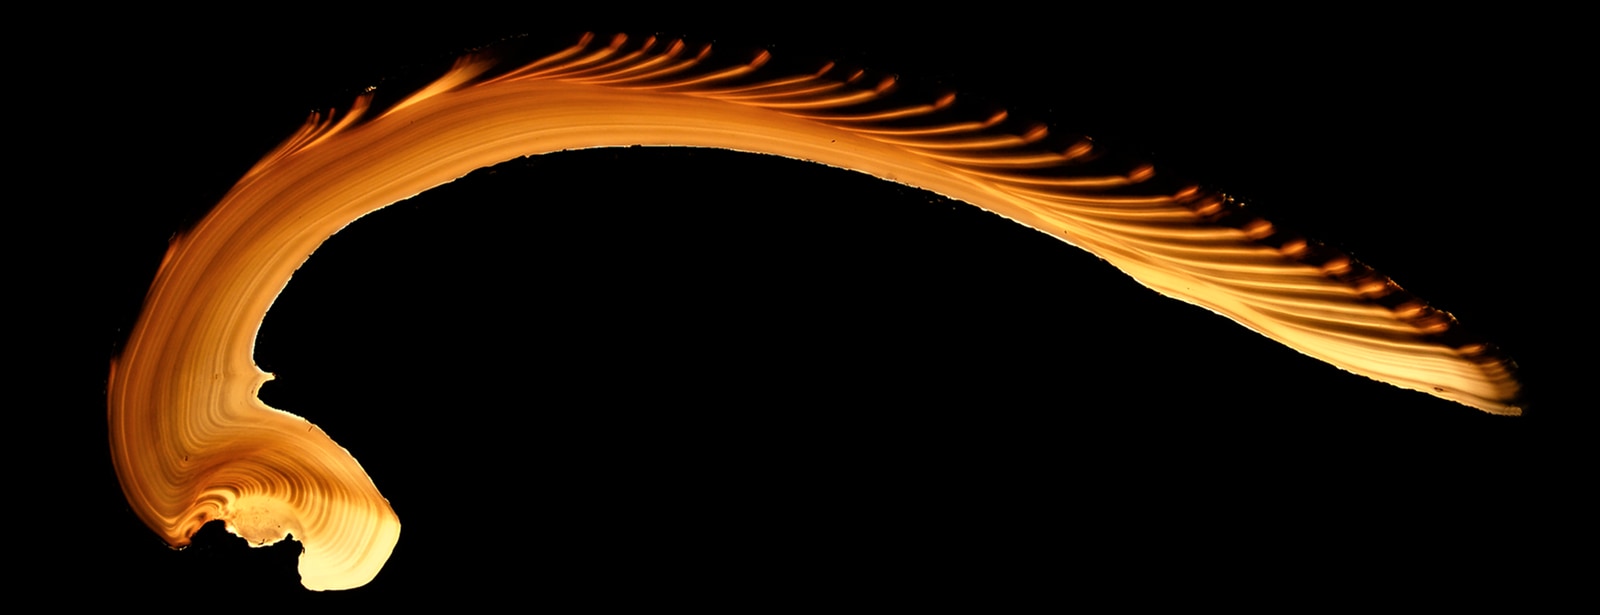
将一片蛤壳薄片迎光举起,眼前仿佛展开一幅地貌:铰合部如陡峭的山脊,长坡向壳缘伸展,浅色条带沿着轮廓铺开。上图中的现生 Mercenaria campechiensis 是佛罗里达自然历史博物馆的藏品。切开贝壳,外表之下藏着的记录才显露出来。[1]
化石贝壳也能保存类似的序列。只是,条带看上去整齐规律,很容易引人误读。纹线是壳体上实际存在的痕迹,将它视作一天或一年,则是一种解释。硬组织年代学(sclerochronology)研究生长中的硬组织如何记录时间,首先要厘清的就是纹线与时间的对应关系。[2]
沿着这一区分,研究者可以从一只蛤的生长季追溯到地球远古的自转节律。它也解释了为何有些保存精美的贝壳,恰好漏记了主人一生中最寒冷的几周。
让生长带显现
双壳类动物不断添加新物质,使贝壳向外延伸。沉积过程的变化会留下生长增量,各段增量之间以纹线相隔,其排列有时反映一年中的季节变化,有时对应潮汐或昼夜节律。几种节律还会层层嵌套。因此,计数之前,研究者须先确认眼前显现的是哪一种时间尺度。[2]
制样能让这些层次显露出来。沿横切生长纹线的方向制成切片后,可以抛光表面,在反射光下观察;也可以将切片磨得足够薄,以透射光观察。蚀刻和染色能增强层间差异。这些处理让物质上的区别更容易辨认,至于它们对应的日期,还需要另行确定。同一道分界在不同照明条件下会呈现不同面貌,单凭“数深色条纹”难以建立可靠的计数规则。[2]
这项工作像是在读一份标点尚存、计时单位却有待重建的手稿。要把它读成一份可信的日历,还需要另一类证据。
为一条纹线确定时长
氧同位素测量可以用来校验。贝壳碳酸盐形成时,周围水体的温度和同位素组成都会影响它的同位素特征。反复出现的季节性波动,有助于识别年度周期。确认季节节律与为每个样品推定精确水温,两者所需的证据程度不同;后者还须对古代水体作出额外假设。[1]
现生动物为检验这种对应关系提供了条件。David Goodwin 及同事在 2001 年的一项研究中,将加利福尼亚湾北部采集的两只活体 Chione cortezi 的贝壳,与同一地点的温度记录作了比较。他们把日生长增量的宽度与氧同位素取样位置对应起来,再用实测环境条件核验壳体记录。[3]
这两个个体从 3 月下旬或 4 月上旬开始沉积壳体,到 11 月下旬或 12 月上旬结束。水温高于约 17°C 时开始生长,高于约 31°C 时生长减缓或停止。这些温度界限来自特定环境下的观测,其适用范围限于研究中的个体与条件。[3]
即便在同一只贝壳上,各个化学分析样品代表的时间长度也有差别。有些样品综合了超过三周的记录,另有许多样品涵盖的时间少于五天。因此,沿取样轨迹等距离取样,得到的时间间隔仍会长短不一。每一时段留下多少壳体供人取样,取决于动物自身的生长。[3]
谨慎数出白垩纪的一天
一种已经灭绝的厚壳蛤类双壳动物 Torreites sanchezi,展示了这种方法所能追溯的时间深度。Niels de Winter 及同事研究了编号为 NHMM 2014 052 的标本,产自阿曼 Samhan 组,年代为晚白垩世坎潘期晚期,距今超过 7000 万年。他们在 2020 年发表的论文中,考察了标本保存下来的外壳层中极为细密的纹层。[4]
研究团队结合了可见纹层的计数、反复出现的化学信号和季节记录。激光取样的间距为 10 微米,足以分辨厚约 40 微米的纹层内部的变化。在校正保存不完整的影响后,综合估计结果为每年 372 个纹层,经误差传播计算得到的不确定度为 8.4。将这些纹层解释为日生长层,推算出的一天长度约为 23 小时 31 分钟。[4]
这个引人注目的数字,背后是一连串测量与校正,数条纹只是其中一步。它约束的是一年内包含多少个昼夜周期。化石本身的地质年龄则依据其地层背景确定,两者回答的是不同问题。[4]
日历也会停下
对贝壳记录而言,一段完全停止沉积的时期,有时恰是影响最深的部分。Goodwin、Bernd Schöne 和 David Dettman 在 2003 年的一项研究中,用模型分析生长速率变化和季节性停长如何影响氧同位素记录,随后在一只 Chione cortezi 贝壳上比较了不同的取样方案。[5]
他们的工作区分了两个问题。生长缓慢时,较长的一段时间被压进较少的壳体材料中。一份样品容易混合记录多种环境条件,而更精细的取样有助于分辨这些差别。完全停长时,该时段则没有新的碳酸盐沉积。对于从未留下壳体材料的时段,再高的分析精度也无法从中恢复环境测量值。[5]
重建古代季节变化时,这一区分十分要紧。沿贝壳生长方向依次读取记录,若看到温度变化幅度收窄,原因可以是动物长得更慢,或壳体记录的生长季缩短。即使水体的季节温差保持原样,也能出现这种结果。因此,单个动物壳体上的记录变化,还须与气候变化加以辨别。[5]
这样的限度,让贝壳记录显出一种贴近生命本身的意味。它记录环境,而留下记录的也是环境中的一员:一只拥有自身耐受范围、生长节律与停顿的动物。读懂贝壳,须始终把这只动物放在眼前。生长带可以告诉我们生长发生在何时;测量点之间的空隙里,也能藏着生长漏记的时间。
资料来源
- David K. Moss、Linda C. Ivany 和 Douglas S. Jones,〈Fossil bivalves and the sclerochronological reawakening〉,Paleobiology(2021)——年度周期校准及图 1 中的标本照片。
- Bernd R. Schöne 和 Donna M. Surge,〈Bivalve sclerochronology and geochemistry〉,Treatise Online 46(2012)——贝壳形成、周期性生长增量与制样方法。
- David H. Goodwin 及同事,将 Chione cortezi 的日生长增量、氧同位素与温度相互校准的研究,PALAIOS 16(2001),387–398 页——作者网站所载全文。
- Niels J. de Winter 及同事,〈Subdaily-Scale Chemical Variability in a Torreites Sanchezi Rudist Shell: Implications for Rudist Paleobiology and the Cretaceous Day-Night Cycle〉,Paleoceanography and Paleoclimatology(2020)——机构网站的论文记录。
- David H. Goodwin、Bernd R. Schöne 和 David L. Dettman,〈Resolution and Fidelity of Oxygen Isotopes as Paleotemperature Proxies in Bivalve Mollusk Shells: Models and Observations〉,PALAIOS 18(2003),110–125 页——作者网站所载全文。