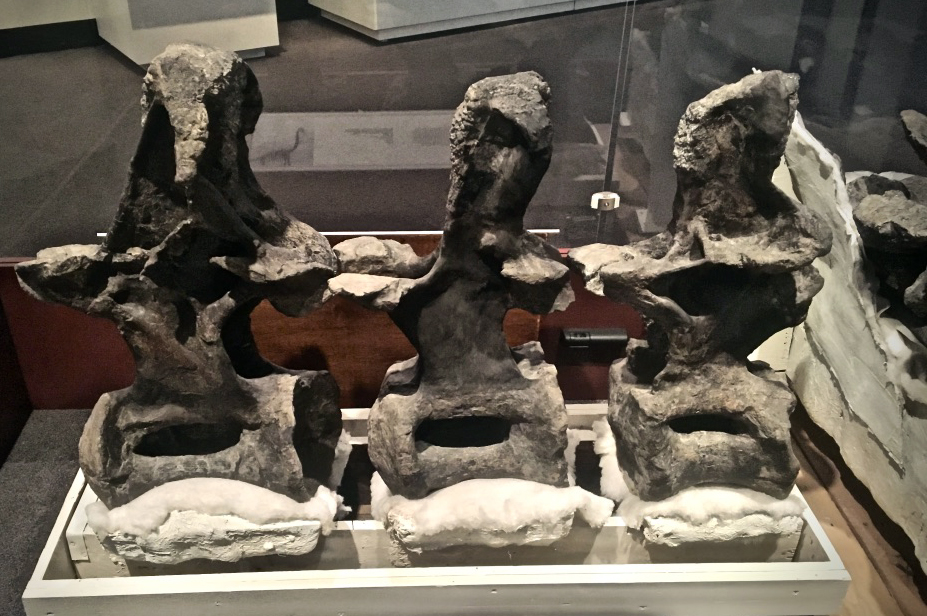
人们常用“空心”形容蜥脚类的骨头,复杂的解剖特征就此变成了一个过于简单的印象,仿佛也省去了继续解释的必要。蜥脚类椎骨与日常所见的空管子相差很远。[1][2] 骨板、凹窝、孔道和内部腔室共同组成了椎骨的形态。古生物学家据此判断,气囊伸出的憩室曾侵入骨骼,留下这些痕迹。[1][2][4] 要理解蜥脚类如何呼吸、如何减轻颈部重量,还得观察这些特征沿脊柱的分布。
截至 2026 年的研究能够确认,蜥脚类存在骨骼气腔化,这些特征在演化中有迹可循,也有明确的力学作用。至于活体软组织的完整样貌,骨骼记录仍有局限。[1][2][5] 椎骨保存了憩室侵入骨质的位置,却只记录了整套呼吸器官的一部分。讨论气腔化,需要同时照顾证据的分量与保存的限度。
图像说明:题图来自 Wikimedia Commons,拍摄的是菲尔德博物馆收藏的腕龙(Brachiosaurus)正型背椎。[6] 照片让读者直接观察椎骨上的证据。完整的动物轮廓容易让人高估呼吸系统推断的确定程度;椎骨本身更能提醒我们,推断应以保存下来的痕迹为依据。
1)从凹窝、孔道到腔室,辨认气腔化的不同形态
辨认证据,先要区分它们的名称。Mathew Wedel 在 2003 年的两篇经典论文中强调,蜥脚类椎骨上的气腔化特征有多种形态。[1][2] 外表面既有碗状的凹窝(fossae),也有通向骨内深处的孔道(foramina)。椎骨内部则可分为较大的腔室(camerae),或更细小、分隔更复杂的腔室(camellae)。[2] 这些名称帮助研究者区分憩室侵入骨骼的方式,以及骨内腔室的复杂程度。
体型巨大的动物容易让人联想到厚重密实的骨块,蜥脚类椎骨却有着不同的构造。骨板将椎骨外表面分隔成孔隙和承重部分,内部腔室则减轻了椎体与神经弓的重量,椎骨仍保有强度。[1][2] 气腔化的力学作用正在于此:骨质集中在传递载荷的位置,其余部分由空气占据,减少额外的重量。
因此,研究者需要逐个类群、逐段脊柱比较。Wedel 的演化综述指出,基干蜥脚类多见气腔凹窝,衍生类群则发育出更复杂的内部腔室,包括多腔室型(polycamerate)和密集小腔室型(camellate)等形态。[2] 一节椎骨只有一个深凹窝,另一节内部布满细小腔室,两者虽同属气腔化,解剖特征及其复杂程度仍有明显区别。
2)沿脊柱的分布,为气囊推断补充证据
单凭一节骨头上的孔洞,推断的余地很小,沿脊柱反复出现的特征才更有解释力。Wedel 在 Paleobiology 论文中指出,蜥脚类气腔化沿脊柱扩展的演化次序,与鸟类个体发育时椎骨气腔化的次序相近,为气囊系统的存在增添了依据。[1] 鸟类颈部气囊的憩室会侵入颈椎和前部胸椎,腹部气囊则使更靠后的椎骨与综荐骨发生气腔化。[1] 蜥脚类化石中也能看到相近的分布。荐骨前方的椎骨普遍气腔化,荐椎气腔化在新蜥脚类中较为常见,靠近躯干的尾椎则在梁龙类、泰坦巨龙类等部分类群中出现气腔化。[1][2]
由此,椎骨形态与呼吸生理联系起来。若痕迹仅见于颈部和躯干前段,较审慎的推断是存在颈部气囊。[1][2] 当荐椎乃至部分尾椎也出现气腔化时,研究者便更有理由推测,气囊系统延伸到了胸腹部更广的范围。[1][5] 这仍是依据骨骼特征作出的间接推断,其可信度来自特征分布的规律。
骨骼上的分布也有不规则之处。Wedel 和 Taylor 在 2013 年发表于 PLOS ONE 的论文中,研究了长颈巨龙(Giraffatitan)与迷惑龙(Apatosaurus)的尾椎。一些气腔化尾椎与其他气腔化区域之间,夹着缺少气腔痕迹的椎骨。[5] 这种气腔化间断(pneumatic hiatuses)表明,单节椎骨上的侵入痕迹很难与某个气囊的范围逐一对应。两位作者据此推测,活体憩室的分布范围应比骨骼记录显示的更广。[5] 一处缺少骨骼痕迹,尚不足以断定相应软组织也不存在。
3)气腔化为长颈减轻了多少重量
气囊系统的推断引出了另一个问题:憩室侵入椎骨,带来了多大的力学效益?Daniela Schwarz 与 Guido Fritsch 用 CT 比较研究给出了定量估算。[3] 他们重建了 Brachiosaurus brancai 和叉龙(Dicraeosaurus)颈椎内部的气腔,估算这些空间对颈部重量的影响。与没有气腔的状态相比,Brachiosaurus 的颈部最多减重 25%,Dicraeosaurus 则仅减重约 6%。[3]
这组对比说明,比较气腔化,除了有无,还要看具体形态。不同蜥脚类的骨内腔室排列各异,减重效果也随之变化。[2][3] Brachiosaurus 的颈椎属于 semicamellate 型,即大腔室周围分布着较细小的腔室;Dicraeosaurus 的内部腔室则较简单。[3] 这些差别既能用来比较类群,也反映出不同蜥脚类颈部减重效果的差异。
蜥脚类的巨大体型也因此更容易理解。长颈扩大了取食范围,同时也是一段悬伸的负荷,需要骨骼承重、身体保持平衡,还需要持续通气。气腔化减轻了远端部位的重量;这些部位离承重点较远,给身体带来的力学负担尤其大。承担载荷的骨梁仍被保留下来,维持着颈部的完整。[1][3][4]
4)长颈既要承重,也要通气
Taylor 与 Wedel 在 2013 年的 PeerJ 综述中,将气腔化与长颈的其他身体条件放在一起考察。[4] 他们认为,蜥脚类创纪录的颈长有赖于多项条件配合:四足提供稳定的承重基础,头部相对小而轻,颈椎数量多且单节较长。独特的颈椎构造和依靠气囊运作的高效呼吸系统也在其中。[4] 缺少任何一项,长颈的演化或使用都会更困难。
气腔化在其中有两重作用。首先,它直接减轻骨骼重量。Taylor 与 Wedel 总结,许多新蜥脚类荐前椎的气腔体积占比(air-space proportion)约为 0.50 到 0.70,与许多气腔化鸟骨的轻盈程度相近。[4] 其次,气腔化所提示的气囊系统,有助于应对超长气道带来的呼吸死腔(dead space)问题。[1][4] 十五米长的颈部既考验承重,也考验通气。因此,Wedel 较早的生理论文将气囊的作用联系到减重和克服呼吸死腔,并提出了有利于体温调节的推测。[1]
由此把蜥脚类称作“披着爬行动物外皮的大鸟”,超出了证据能够说明的范围。[1][5] 更贴近证据的理解是:椎骨属于一套内部含有空气的系统。沿着这一联系考察骨骼,比把椎骨视作普通的实心承重块,更能解释蜥脚类的巨型化与颈部延长。
5)从骨骼推断软组织,证据能走多远
气腔化为研究古动物的软组织留下了有力但有限的依据。它记录了憩室对骨骼的侵入,显示部分类群的侵入方式更复杂,也表明减重能够带来可观的力学效益。[1][2][3] 据此还可推断,颈部气囊在蜥脚类中分布广泛,至少部分新蜥脚类应当也有腹部气囊。[1][2]
要为每个类群复原完整的肺和气囊、辨明所有通气细节,仍需气腔化之外的证据。一节椎骨即使没有受到侵入,也仍可位于憩室系统的分布范围内。[1][5] 尾部气腔化间断的研究尤其能说明这一点:活体软组织的分布范围可以超出骨骼留下的痕迹。[5] 这种差距来自化石的保存限度。骨骼记录仍然可靠,只是整个生物系统中保存下来的一部分。
蜥脚类气腔化值得持续研究,正因为解剖特征、研究方法与生理推断在这里紧密相连,推断的限度也清晰可见。椎骨内部确实含有空气,骨板与腔室的安排却远比“空心”二字复杂。仔细读懂这些细节,巨型长颈便有了可以追索的力学解释;骨骼将这套解法留在了石头里。[1][2][3][4][5]
来源
- Mathew J. Wedel, "Vertebral pneumaticity, air sacs, and the physiology of sauropod dinosaurs," Paleobiology 29, no. 2 (2003).
- Mathew J. Wedel, "The evolution of vertebral pneumaticity in sauropod dinosaurs," Journal of Vertebrate Paleontology 23, no. 2 (2003) - author-hosted PDF of the original article.
- Daniela Schwarz and Guido Fritsch, "Pneumatic structures in the cervical vertebrae of the Late Jurassic Tendaguru sauropods Brachiosaurus brancai and Dicraeosaurus," Eclogae Geologicae Helvetiae 99 (2006).
- Michael P. Taylor and Mathew J. Wedel, "Why sauropods had long necks; and why giraffes have short necks," PeerJ 1:e36 (2013).
- Mathew J. Wedel and Michael P. Taylor, "Caudal Pneumaticity and Pneumatic Hiatuses in the Sauropod Dinosaurs Giraffatitan and Apatosaurus," PLOS ONE 8, no. 10 (2013).
- Wikimedia Commons,"File:Brachiosaurus holotype dorsal vertebrae.jpg"——本文题图所用椎骨照片的来源页。