溪流旁的一株木贼,能让人格外清楚地看见植物的构造。茎一节接着一节,细小的叶片从节上长出;有分枝的种类,还会在这些位置生出一圈圈枝条。这样的叶片很难让人联想到森林的树冠。然而,木贼的化石亲属中确有木质巨树,人站在树下,会被衬得十分矮小。[1][2]
将一件带有纵肋的芦木(Calamites)化石放在现生木贼的茎旁,相似的外形很容易让人仅凭大小讲述它们的历史:先有巨树,后来留下缩小的幸存者。将化石纳入分析的演化研究,则揭示了家族内部的分岔。早在石炭纪,通向现生木贼的谱系与芦木类乔木的谱系就已各循其路。两者共有的身体构造,来自一个不断分支的家族。[4]
先辨认化石保存的是哪一层表面
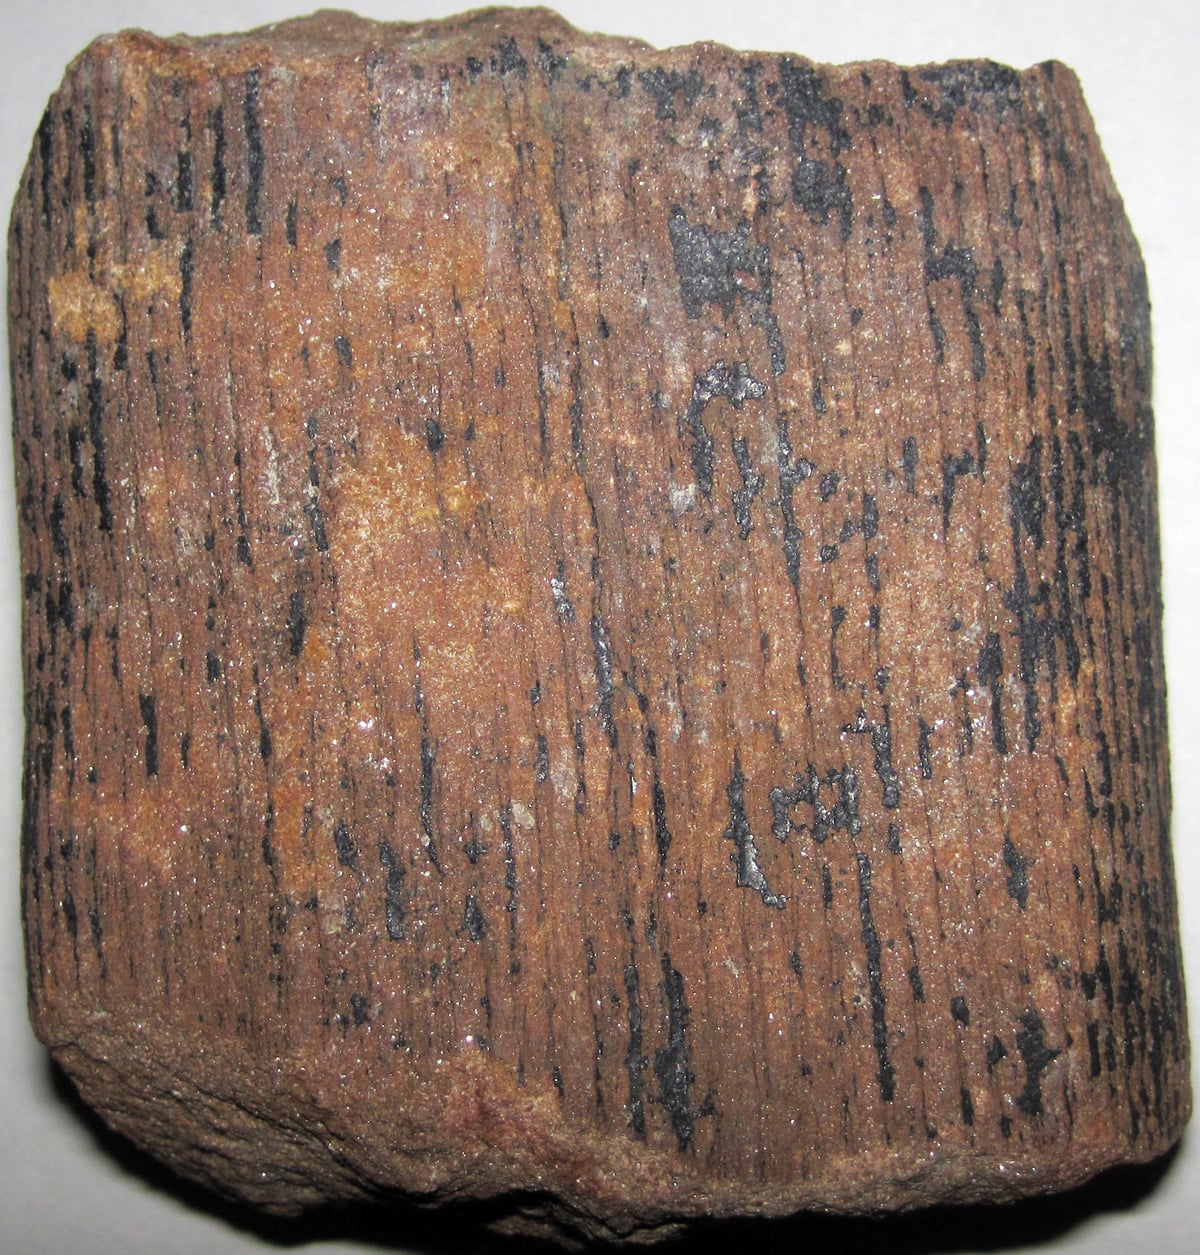
图中这件来自肯塔基州的标本,是芦木(Calamites)的髓腔铸型。摄影者的产地记录写明,标本采自施工碎石;碎石来自 Breathitt 群的 Hyden 组或 Pikeville 组。具体所属地层组尚待确定,其时代可定为宾夕法尼亚亚纪中期,属于石炭纪较晚阶段的成煤森林时期。砂填入原先位于茎干中央的空腔,周围还留有深色的炭化植物残余。[7]
理解这一点,才能读懂这件化石。带有纵肋的圆柱体,保存的可以是茎干内部空腔的形状。它的直径与活体整根树干的直径,未必相等。空腔外原本还有木材和其他组织,它们经历了不同的保存过程。[2]
Barry Thomas 研究了英国北威尔士布林博(Brymbo)的直立芦木遗存,也说明了这种辨认的重要性。内部空腔的铸型与茎干外表面的铸型,看起来都足以让人认作植物,却记录着不同部位的轮廓。他结合分枝关系、茎节特征和矿物层,判断这些遗存怎样形成。重建一片古森林,首先要做好这一步细致的解剖定位:岩石呈现的,究竟是植物的哪个部位。[2]
木材让木贼类长出了另一种形态
保留解剖构造的化石,让讨论得以继续深入。在德国开姆尼茨(Chemnitz),发掘人员从早二叠世的火山沉积中取出一段超过 10 米长的 Arthropitys bistriata 树干。Ronny Rößler、Zhuo Feng 和 Robert Noll 于 2012 年描述了它的内部组织与分枝系统。[3]
在芦木类中,Arthropitys 是用于保留解剖构造的化石材料的属名,与茎干化石所用的属名 Calamites 有别。这件标本的中央区域外,包围着厚实的次生木质部,也就是通常所说的木材。多个级次的木质枝条托起了树冠。[3]
出土的树干超过 10 米,研究者估计完整树木至少高 15 米。这两个数字分别对应发掘所得与复原估计。仅存留下来的部分,已经足以显示它高大的乔木形态。[3]
现生木贼以孢子繁殖,芦木类也属于孢子植物。这种基本的繁殖差异,把它们同森林中产生种子的树木区分开来。萨姆·诺布尔博物馆指出,芦木的木材有独立演化来源,和包含种子植物在内的产木谱系分属不同来路。乔木是一种植物生长形态,植物演化中的不同分支,各自发展出了长成树的方式。[1]
家族树改变了故事的走向
检验这些亲缘关系的关键,在于把目光从现存成员扩展到化石。2018 年,Andrés Elgorriaga 及同事分析了 43 种木贼目植物,其中包括 28 个已灭绝物种。这项研究把解剖、形态证据与现生植物的分子数据合在一起。在重建的演化树上,包含现生木贼属(Equisetum)的类群位于芦木科(Calamitaceae)之外,那些熟悉的芦木类乔木则归入芦木科。[4]
在这项分析中,两条谱系各自独立的历史都可追溯至石炭纪。因此,人们熟悉的「从巨型到小型」顺序,难以可靠地解释它们的祖先关系。分节茎这一保留下来的特征,能够显示亲属之间的相似性;至于某个特定化石类群是否就是现生木贼属的祖先,单凭这一点仍难以确认。[4]
这套亲缘关系来自研究重建,仍有待新化石继续检验。许多成员已经灭绝,仅看现生植物,家族的面貌就会有所缺失。
温泉保存了家族的另一段历史
通向现生木贼的这一支,也留下了丰富的化石记录。巴塔哥尼亚 San Agustín 的侏罗纪温泉沉积保存了细长的地上茎,地下根茎、根和叶鞘仍与之相连。Alan Channing 及同事于 2011 年将这种植物描述为 Equisetum thermale。富含二氧化硅的保存过程留下了内部解剖构造,使研究者得以依据更多细节,将它与现代木贼比较;熟悉的外轮廓只是其中一部分。[5]
这些遗存显示,早在 1.5 亿多年前,木贼类就已具有一组可辨认的现代特征。研究者认为,它们密集生长在受地热水影响的湿地中。相互连接的器官和保存下来的组织,是直接证据;它们对特定化学胁迫的耐受能力,则是依据沉积环境以及与现生植物的比较推断出来的。[5]
这件化石证实,一套古老的身体构造早已存在。它本身是一个已灭绝的物种,有自己的特征组合;关于某个现生物种自侏罗纪以来始终未变的说法,仍超出了这件化石所能证明的范围。[5]
幸存者留下了一幅失真的家族图景
为现生分支测定年代时,还要区分两种时间:整个大谱系的起源年代,以及所有现生木贼最后共同祖先的年代。它们对应不同的演化事件。Maarten Christenhusz 及同事在 2021 年的一项研究中,估计存续至今的各谱系最早约于 1.75 亿年前分化,同时也讨论了其他分析得出的较晚年代。化石在演化树上的位置、取样范围和分子钟假设,都会影响估算结果。[6]
这项研究还检验了人们对现生木贼属的一种直觉:今天热带地区的巨型木贼,体形与大型化石类型相似,因此应当位于家族的祖先位置。研究重建的演化关系未将它们放在这样的基部位置。仅凭植株高度,很难判断祖先与后代的演化方向。[6]
将这些标本放在一起阅读,需要留意三个不同的问题。肯塔基州的铸型,要求辨认茎干的内部表面;开姆尼茨的古树,要求依据保存的木材与分枝复原;巴塔哥尼亚的木贼,则要求区分解剖构造的延续与物种始终未变的说法。三类材料各有所长,彼此补足,不能互相替代。
溪流旁,现生木贼依然展示着一节节重复的茎。改变的是人们从这些茎节中读出的历史:这个家族曾经更加多样,既有木材厚实的乔木,也有延续至今的分支;后者熟悉的外形中,同样藏着自己漫长的演化历程。
来源
- 俄克拉何马萨姆·诺布尔自然历史博物馆,“Horsetails”——现生木贼的生长形态、孢子繁殖与芦木木材的独立演化。
- Barry A. Thomas,“In situ stems: preservation states and growth habits of the Pennsylvanian (Carboniferous) calamitaleans”,Palaeontology 57(2014)——布林博化石的保存状态;阿伯里斯特威斯大学记录。
- Ronny Rößler、Zhuo Feng 和 Robert Noll,“The largest calamite and its growth architecture”,Review of Palaeobotany and Palynology 185(2012)——开姆尼茨标本的解剖构造与复原高度;机构网站 PDF。
- Andrés Elgorriaga 等,“Origin of Equisetum: Evolution of horsetails (Equisetales) within the major euphyllophyte clade Sphenopsida”,American Journal of Botany 105(2018)——纳入化石的系统发育分析;作者在博物馆网站提供的 PDF。
- Alan Channing 等,“Equisetum thermale sp. nov. (Equisetales) from the Jurassic San Agustín hot spring deposit, Patagonia”,American Journal of Botany 98(2011)——解剖构造与生态;机构网站 PDF。
- Maarten J. M. Christenhusz 等,“Biogeography and genome size evolution of the oldest extant vascular plant genus, Equisetum (Equisetaceae)”,Annals of Botany 127(2021)——分化年代估算、其中的不确定性,以及现生巨型木贼的演化位置。
- James St. John,肯塔基州杰克逊附近 Breathitt 群芦木髓腔铸型照片(2019),经由维基共享资源提供——标本产地、保存状态与图片署名,CC BY 2.0。