短颈潘龙(Brachytrachelopan mesai)最出人意料的部位,就在肩膀前方。博物馆里的复原骨架有蜥脚类恐龙那副熟悉的身形:厚实的胸廓、四条粗壮的腿,以及一条长尾。视线移到颈部,还没来得及向前延伸,脖子就已到了尽头。2005 年,Oliver Rauhut 及其同事描述这只来自巴塔哥尼亚的恐龙时指出,它的颈部比当时已知的其他叉龙科成员短约 40%;而叉龙科在蜥脚类中本就属于颈部较短的一支。[1]
这种比较,比一个“最短”的称号更有意义。其他蜥脚类支系把颈部拉长到了惊人的程度,短颈潘龙却沿着缩短的方向演化。它的身体比例引出了一个具体问题:对于大型植食动物,让嘴离身体更近,能带来什么好处?
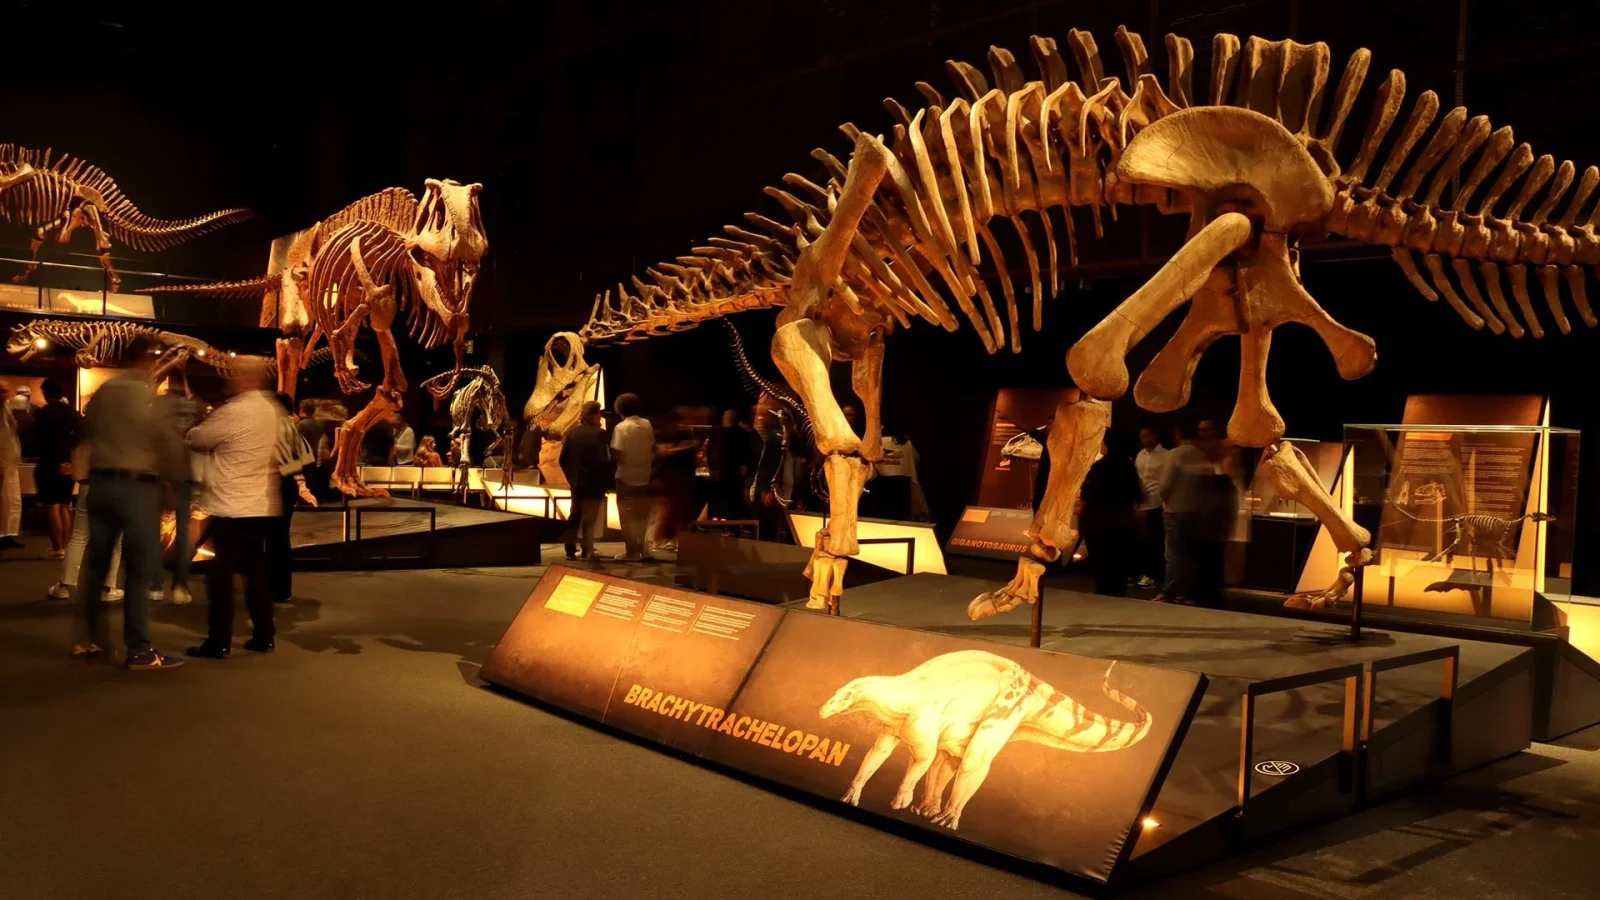
河湖地层中的一副残缺骨架
命名所依据的标本编号为 MPEF-PV 1716,收藏于阿根廷的埃吉迪奥·费鲁利奥古生物博物馆(Museo Paleontológico Egidio Feruglio)。这件标本的科学价值主要集中在脊柱一带。保存下来的材料包括部分颈椎、躯干椎和骶椎,以及肋骨、骨盆材料和一条后肢的部分骨骼,其中缺少头骨。这些骨骼足以勾勒出身体中轴的大部分形态;博物馆里那副完整的轮廓,则还需补上出土材料所缺失的部分。[1][3]
化石出自巴塔哥尼亚中部丘布特省的 Cañadón Calcáreo 组。这套晚侏罗世沉积记录了当时的河流与湖泊。2026 年,一项研究该地层另一种蜥脚类恐龙的论文汇总了放射性测年证据,将地层底部的年龄定在约 157.4 百万年前,接近牛津期与启莫里期的交界。[4] 这个年代为地层序列标出时间参照,短颈潘龙骨架的确切年代仍须另行确定。
同一项研究还在图上标出了该组内多处蜥脚类化石产地,包括短颈潘龙、Tehuelchesaurus,以及新近命名的 Bicharracosaurus。[4] 短颈潘龙由此被放进了更广阔的区域记录之中,与当地其他形态各异的蜥脚类相互参照。仅凭这些发现,尚不足以认定各物种曾在同一时刻、同一片洪泛平原上共同取食。地质背景首先呈现的是一片随时间变化的河湖环境;要还原某一时刻的动物群落,还需进一步的证据。
短颈的依据,就在颈椎本身
颈部有多长,一方面取决于颈椎的数量,另一方面取决于每节颈椎沿前后方向延伸的长度。短颈潘龙保存下来的颈椎,前后长度明显缩短。2025 年的一篇综述将它的体长估算为不足 10 米,并指出其颈椎异常短,相关解剖特征被解释为限制了颈部向上弯曲的幅度。综述也沿用了它与低位取食相关的解释。[3]
这项观察的依据,要比看着装架骨骼、判断头部位置较低更为扎实。短颈的比例直接保存在骨骼中。在此基础上讨论取食方式,才是追问:这样的比例适合哪些动作,又适合让头颈保持在哪些位置?
Michael Taylor 和 Mathew Wedel 在 2013 年的比较研究中,将短颈潘龙的颈长估算为约 1.1 米。他们在表格中将其颈椎数量标为不确定。这也提醒我们,测量数字即使令人印象深刻,也有结合保存骨骼与复原推算的情况。[5] 现存各节颈椎的短小已十分鲜明,颈椎的确切总数则仍有更多不确定之处。
两位作者对蜥脚类长颈演化的整体解释,也让短颈潘龙格外引人关注。四肢托住庞大的身体,给出稳定的支点;相对较小的头部减轻了颈部远端的负担;与呼吸系统相关的含气腔隙,则减轻了颈部的重量。这些特征合在一起,让一些蜥脚类的头颈能够伸到很远。[5] 它们为颈部延长创造了条件,演化的方向却仍有余地。短颈潘龙展示了一个支系能够与常见的长颈形态相差多远。
取食低矮植物,长颈也有优势
短脖子配低矮植物,是一个很容易想到的解释。不过,要理解这副身形,还得考察取食高度之外的因素。
2011 年,Graeme Ruxton 和 David Wilkinson 用模型研究了蜥脚类低位取食的能量收益。较长的颈部可以让嘴扫过更大一片植被,同时让沉重的身体留在原地。根据他们的计算,颈部一旦超过能够触及地面的最低长度,最初增加的那一段便能节省可观的能量;随着颈部继续加长,每增加一段所带来的收益逐渐减小。[6]
因此,即使食物就在地面附近,长颈仍有用处:除了向上够取植物,它也能扩大水平方向的取食范围。这套模型的模拟对象并未具体指向短颈潘龙,单靠模型本身也不足以解释该物种的演化。[6] 但它说明了,“食物长得低”还只是解释的一部分。
更值得探究的假说是,短颈潘龙取食的某些植被,恰好适合用一段紧凑、活动范围受限的颈部来采食。它的解剖特征使这一假说有了合理依据;要辨明那些植物的种类、分布间距,以及动物究竟怎样咬取植物,还需更多证据。短颈缩小了推测的范围,具体食谱仍留待查明。
从展架继续追问真实的动物
复原动作又多了一层不确定性。Taylor 在 2022 年的一项调查中记录了蜥脚类颈部化石普遍存在的残缺与变形,连一些著名的博物馆标本也有这类问题。修复会掩盖缺失的部分,挤压则会改变椎骨关节的形状。如果依据化石骨骼的拼合方式计算动物平时的姿态和活动幅度,这些保存问题都会影响结果。[7]
把这些普遍存在的保存问题考虑在内,短颈潘龙独特的身体比例依然有明确依据。需要重新衡量的,是某个具体姿态究竟有多大把握。复原骨架可以清楚展示一段短而紧凑的颈部,其确切活动范围则仍有待厘清。
再看那张照片,眼前的动物便超出了“缩短脖子的巨兽”这一印象。有限的取食范围,属于一个真实存在的演化分支,也伴随着这个分支自身的取食限制。证据最充分的部分已经写在脊柱上:蜥脚类可以保留庞大的躯体,同时让颈部比例朝另一个方向发展。究竟怎样的日常生活让这副身形行之有效,仍是接下来需要回答的问题。
资料来源
- Oliver W. M. Rauhut 及同事,“Discovery of a short-necked sauropod dinosaur from the Late Jurassic period of Patagonia”,Nature 435(2005),670–672——原始描述、正模标本及颈部比例比较。
- Ámbito Cero,“Dinosaurios de la Patagonia”(2023)——展览设计方的项目页面,也是博物馆照片的来源。
- Tom T. P. van der Linden 及同事,“Introduction to Diplodocoidea”,Palaeontologia Electronica 28(2025)——短颈潘龙保存下来的化石材料、分类及取食方式解释;机构存档 PDF。
- Alexandra Reutter 及同事,“Bicharracosaurus dionidei, gen. et sp. nov., a new macronarian (Dinosauria, Sauropoda) from the Late Jurassic Cañadón Calcáreo Formation of Argentina and the problematic early evolution of macronarians”,PeerJ(2026)——地层年代、沉积环境及图示蜥脚类化石产地。
- Michael P. Taylor 和 Mathew J. Wedel,“Why sauropods had long necks; and why giraffes have short necks”,PeerJ 1(2013),e36——比较测量数据及颈部延长的解剖前提。
- Graeme D. Ruxton 和 David M. Wilkinson,“The energetics of low browsing in sauropods”,Biology Letters 7(2011),779–781——水平取食范围所带来收益的模型研究。
- Michael P. Taylor,“Almost all known sauropod necks are incomplete and distorted”,PeerJ 10(2022),e12810——化石保存状况对颈部姿态与动作复原的限制。