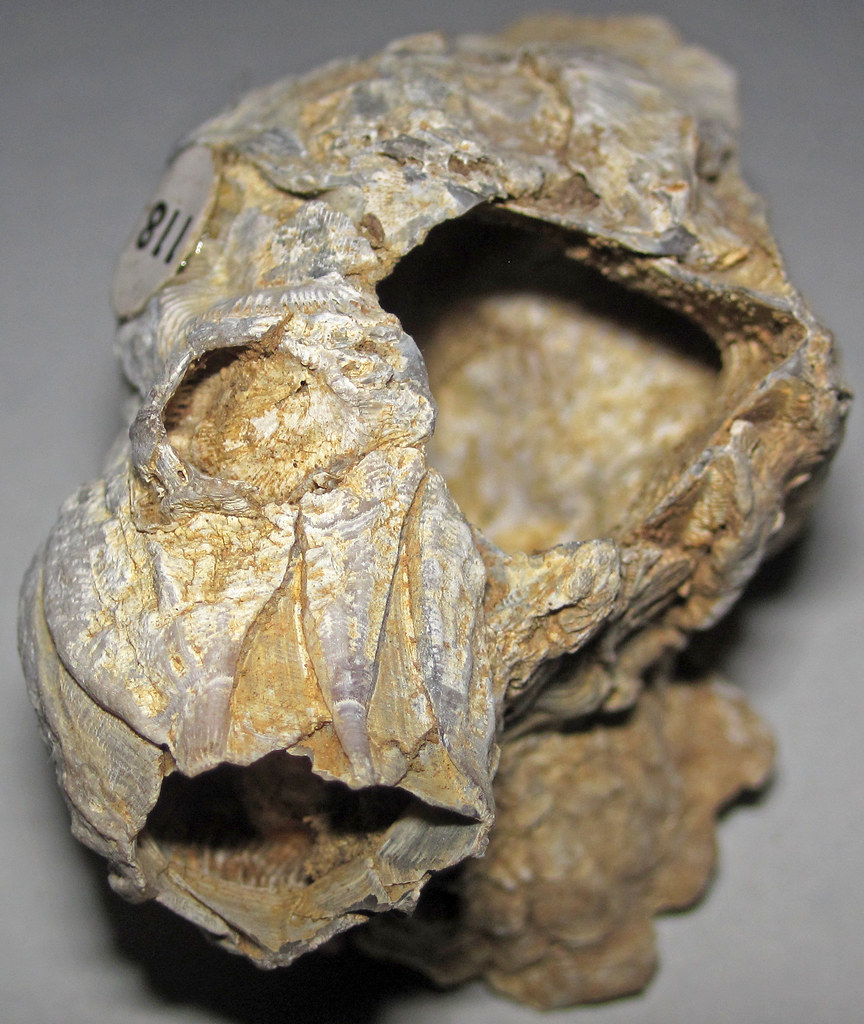
橡实状藤壶的化石像一座失去屋顶的微型建筑。壳壁围着开口向上立起,接缝将外壳分成几块。照片中的中新世标本,让这种构造显得格外清楚。[1] 每一圈壳壁里都曾住着一只甲壳动物,与蟹和虾有亲缘关系,固着在某个表面上,用特化的附肢摄食。[2]
这样的身体是怎样演化出来的?有柄藤壶失去柔软的柄,只解释了其中一部分。化石保存下来的壳板组合,帮助我们理解其余变化:外壳降低、两侧封合,开口处嵌入一副可以活动的壳盖。[3]
先有固着生活,后有橡实状外壳
鹅颈藤壶的柄柔软可弯,外观上带着几分松动、游移的感觉。不过,有柄藤壶的成体早已过着固着生活。柄部消失,改变的是身体与附着基底相接的方式;固着生活本身的起源还要更早。自由游泳属于它们的幼体阶段。[2]
解读演化树时,这一区别十分重要。“有柄”和“无柄”便于描述外形,却不能据此把藤壶划成祖先各异、泾渭分明的两大家族。Christine Ewers-Saucedo 及同事在2019年的综合研究中指出,柄部消失曾发生多次,深海藤壶 Neoverruca 所在的谱系也经历过这一变化。因此,相近的轮廓之下,可以藏着不同的演化历史。[5]
问题由此变得更具体:在通向橡实状藤壶的谱系上,哪些部位发生了变化,先后次序又是怎样的?
散落成壳板的古海岸
瑞典南部伊沃克拉克(Ivö Klack)约8000万年前的沉积物,保存着一段白垩纪岩岸的记录。巨大的片麻岩块曾矗立在海生动物之间,动物破碎的骨骼在岩块周围堆积。研究者从岩块之间的凹隙采集到的材料中,有大量单独散落的藤壶壳板。[3]
Andrew Scott Gale 与 Anne Mehlin Sørensen 以这些遗存为材料开展研究,论文于2014年在线发表,收入2015年的期刊卷册。他们掌握的证据大多已散解,零散的部件需要逐一比较,再作复原。他们的分析将几种化石类型放在了通向现生橡实状藤壶类群的演化分支上。[3]
分析分支关系,与描绘直接的祖先后代关系,两者需要区分。化石保存的特征,有些沿袭祖先,有些出现较晚,这样的组合有助于判断亲缘关系。但拥有这样的组合,并不足以证明它来自另一化石物种的实际祖先种群。按解剖特征的变化排列标本,提出的是一种演化历史解释,仍有待更多材料检验。
填合壳壁之间的空隙
Benny Chan 及同事在2021年概述的复原方案中,早期无柄类型的身体下方仍有彼此叠覆的鳞片,因此身体高出附着面。在 Brachylepas 中,两块相对的大壳板之间,两侧仍留有空隙。按照这一解释,鳞片逐渐增大,成为新增的壁板,橡实状藤壶的围壁随之发育,最终将身体围得更完整。[2]
这一解释也改变了对解剖部位是否同源的判断,也就是它们是否由祖先的同一部位演变而来。橡实状藤壶侧面的壳板,与有柄近亲侧面的壳板,其对应关系仍需考察。单看位置得出的相似性判断,在演化历史中未必有依据。
这些推测中的变化,在功能上也有合理之处:更低的外壳、贴合紧密的壁板,以及闭合时更平坦的壳盖,都具有减轻磨蚀和失水的潜在优势。Gale 与 Sørensen 参照现生藤壶评估了这些优势。化石直接保存了形态,形态带来的益处则来自研究者的推断。[3]
低矮的外壳,多条演化历史
化石还改变了演化树上的分类名称。2023年,Andy Gale 与 Steven Vidovic 比较了18个分类单元的48项解剖特征。分析支持橡实状藤壶与外形不对称的疣藤壶类具有密切亲缘关系。同时,研究将过去统归于 Brachylepadomorpha 的化石拆分,分别归入这两条分支的干群。[4]
干群由已经灭绝的近亲组成。相对于某个现生类群的最近现生姊妹类群,干群成员与前者的亲缘关系更近,但位于前者最近共同祖先及其全部后代所构成的群体之外。在这项研究中,旧类群被拆分后,外表相似的化石分别靠近了不同的现生分支。两位作者建议废弃原来的这一目级类群。[4]
这一结果仍是一项假说,相关分歧也有明确所在。Zhibin Gan 及同事在2022年发表的线粒体基因组分析,未得出橡实状藤壶与疣藤壶类互为姊妹群的结果。2023年的化石研究也承认,所提出的壁板对应关系仍有争议。[4][6]
分歧既涉及亲缘关系,也涉及如何解读解剖特征。要解决这些问题,需要扩大样本范围,检验提出的壳板同源关系能否与遗传证据所揭示的亲缘关系相互吻合。单凭给某种动物贴上“原始”的标签,无法完成这项工作。
Ewers-Saucedo 及同事的综合研究此前已揭示,藤壶演化树的知识仍有大面积空白,深海和北极的类群尤其如此。[5] 海岸上常见的动物,其祖先历史仍受取样不足所限。
再看这些敞口的化石外壳。坚实的轮廓,容易让人想到一个单一、简明的起源故事。壳板之间的接缝却引出了更有意思的问题:哪些部件继承自祖先,哪些逐渐增大,又有哪些消失了?辨清这些细小差异,散落的壳板就能还原那些被完整外形掩藏的变化。
资料来源
- James St. John,“Balanus concavus (fossil barnacles) (Choptank Formation, Miocene; Calvert County, Maryland, USA) 1”(2024)——原始照片与标本产地信息。
- Benny K. K. Chan 及同事,“The evolutionary diversity of barnacles, with an updated classification of fossil and living forms”,Zoological Journal of the Linnean Society 193(2021),789–846——成体的固着与摄食,以及壳板演化的假说;朴次茅斯大学提供的 PDF。
- Andrew Scott Gale 与 Anne Mehlin Sørensen,“Origin of the balanomorph barnacles (Crustacea, Cirripedia, Thoracica): new evidence from the Late Cretaceous (Campanian) of Sweden”,Journal of Systematic Palaeontology 13(2015),791–824;2014年在线发表——伊沃克拉克的化石材料、解剖特征的演变次序与功能解释;录用稿。
- Andy S. Gale 与 Steven U. Vidovic,“The origins of major sessile cirripede groups; a revision of Cretaceous Brachylepadomorpha and Verrucomorpha”,Journal of Systematic Palaeontology 21(2023),2258370——修订后的化石亲缘关系,以及存在争议的壳板同源关系;朴次茅斯大学提供的 PDF。
- Christine Ewers-Saucedo 及同事,“Towards a barnacle tree of life: integrating diverse phylogenetic efforts into a comprehensive hypothesis of thecostracan evolution”,PeerJ 7(2019),e7387——柄部的多次丧失,以及系统发育取样的空白。
- Zhibin Gan 及同事,“Phylogeny and adaptative evolution to chemosynthetic habitat in barnacle (Cirripedia: Thoracica) revealed by mitogenomes”,Frontiers in Marine Science 9(2022),964114——对橡实状藤壶与疣藤壶类互为姊妹群这一假说提出质疑的线粒体证据。